Introducción
El tejido epitelial constituye uno de los cuatro tejidos fundamentales del organismo humano y representa una de las estructuras más importantes para comprender la organización microscópica del cuerpo. Aunque en ocasiones se estudia como una simple clasificación de células planas, cúbicas o cilíndricas, su verdadero significado histológico es mucho más profundo. Los epitelios forman interfaces especializadas entre diferentes compartimentos, controlan el intercambio de sustancias, protegen superficies, participan en absorción, secreción, transporte, percepción sensorial y contribuyen de manera decisiva al mantenimiento de la homeostasis.
La superficie externa del cuerpo está recubierta por epitelio. También lo están el tubo digestivo, las vías respiratorias, el aparato urinario, numerosos conductos glandulares y gran parte de las cavidades internas. Incluso estructuras que pueden parecer completamente diferentes desde el punto de vista macroscópico, como la epidermis, el endotelio vascular y el epitelio intestinal, comparten principios histológicos fundamentales: sus células se encuentran estrechamente relacionadas entre sí, presentan polaridad estructural, se apoyan sobre una membrana basal y están organizadas para cumplir una función específica.
La histología del tejido epitelial ilustra de manera particularmente clara la relación entre estructura y función. Un epitelio plano simple tiene una arquitectura extremadamente delgada porque debe facilitar difusión o filtración. Un epitelio estratificado escamoso posee múltiples capas porque su principal función es resistir fricción y agresiones mecánicas. El epitelio cilíndrico intestinal desarrolla microvellosidades porque necesita maximizar su superficie absortiva. El epitelio respiratorio posee cilios porque debe movilizar moco y partículas hacia la faringe. El urotelio modifica su morfología según el grado de distensión porque debe mantener una barrera impermeable mientras la vejiga cambia continuamente de volumen.
Por ello, identificar un epitelio no consiste únicamente en memorizar su nombre. La observación histológica debería permitir responder qué función realiza, por qué posee determinada organización, cómo se relaciona con el tejido conectivo subyacente y qué consecuencias clínicas aparecen cuando alguno de sus componentes pierde integridad.
El tejido epitelial también posee una enorme relevancia patológica. La mayoría de las neoplasias malignas humanas se originan en células epiteliales y reciben el nombre general de carcinomas. Fenómenos como metaplasia, displasia, pérdida de polaridad celular, alteración de las uniones intercelulares y ruptura de la membrana basal forman parte de la progresión hacia malignidad. Del mismo modo, enfermedades ampollosas, defectos ciliares, síndromes de malabsorción y alteraciones de barreras epiteliales pueden entenderse mejor cuando se conoce la histología normal.
Comprender el tejido epitelial es, por tanto, una puerta de entrada a prácticamente toda la histología de órganos y sistemas.
Definición del tejido epitelial
El tejido epitelial es un tejido constituido por células estrechamente asociadas entre sí, con escasa matriz extracelular interpuesta, organizadas en láminas continuas o estructuras glandulares y apoyadas sobre una membrana basal que las separa del tejido conectivo subyacente.
Esta definición reúne varias propiedades esenciales. En primer lugar, existe una marcada cohesión celular. A diferencia del tejido conectivo, donde las células pueden encontrarse ampliamente separadas por una matriz extracelular abundante, las células epiteliales prácticamente están en contacto unas con otras. La estabilidad de esta organización depende de complejos sistemas de adhesión intercelular que incluyen uniones estrechas, uniones adherentes, desmosomas y otros mecanismos especializados.
En segundo lugar, el epitelio presenta polaridad. La región de la célula que está orientada hacia una superficie libre no es estructural ni funcionalmente equivalente a la región que se encuentra en contacto con la membrana basal. Esta polaridad permite distribuir receptores, canales, transportadores y proteínas de membrana de manera asimétrica, haciendo posible el transporte direccional de sustancias.
En tercer lugar, todos los epitelios están relacionados con una membrana basal. Esta estructura no solamente sirve como soporte mecánico. También participa en señalización, organización celular, filtración, regeneración y mantenimiento de la diferenciación epitelial.
Finalmente, los epitelios carecen de vasos sanguíneos en su interior. Los nutrientes y el oxígeno deben alcanzar las células epiteliales mediante difusión desde capilares situados en el tejido conectivo subyacente. Esta característica tiene numerosas consecuencias sobre su organización, grosor y capacidad de regeneración.
Origen embrionario del tejido epitelial
Una característica especialmente interesante del tejido epitelial es que no deriva exclusivamente de una sola capa germinal. Los epitelios del cuerpo pueden originarse a partir de ectodermo, mesodermo o endodermo dependiendo de su localización.
El ectodermo da origen, entre otras estructuras, a la epidermis y a diversos epitelios relacionados con la superficie corporal. El endodermo origina gran parte del epitelio del tubo digestivo y del aparato respiratorio. El mesodermo contribuye a epitelios especializados como el endotelio que recubre vasos sanguíneos y linfáticos, así como al mesotelio que reviste cavidades serosas.
Esta diversidad de origen demuestra que “epitelio” describe fundamentalmente una organización histológica y funcional, no una procedencia embrionaria única.
Aunque el origen embrionario puede variar, los diferentes epitelios desarrollan características convergentes. Las células se organizan estrechamente, adquieren polaridad, establecen uniones especializadas y mantienen una relación constante con la membrana basal.
Características generales del tejido epitelial
Una de las propiedades más evidentes del tejido epitelial es su elevada celularidad. Cuando se observa al microscopio, gran parte del campo está ocupado por células, mientras que la matriz extracelular es escasa. Esta disposición permite generar barreras continuas y controlar el paso de sustancias entre compartimentos.
La cohesión intercelular es indispensable para mantener esta continuidad. Si las células epiteliales estuvieran simplemente yuxtapuestas sin sistemas de unión especializados, pequeñas fuerzas mecánicas serían suficientes para separar el tejido. Los complejos de unión distribuyen las tensiones y permiten que el epitelio funcione como una unidad.
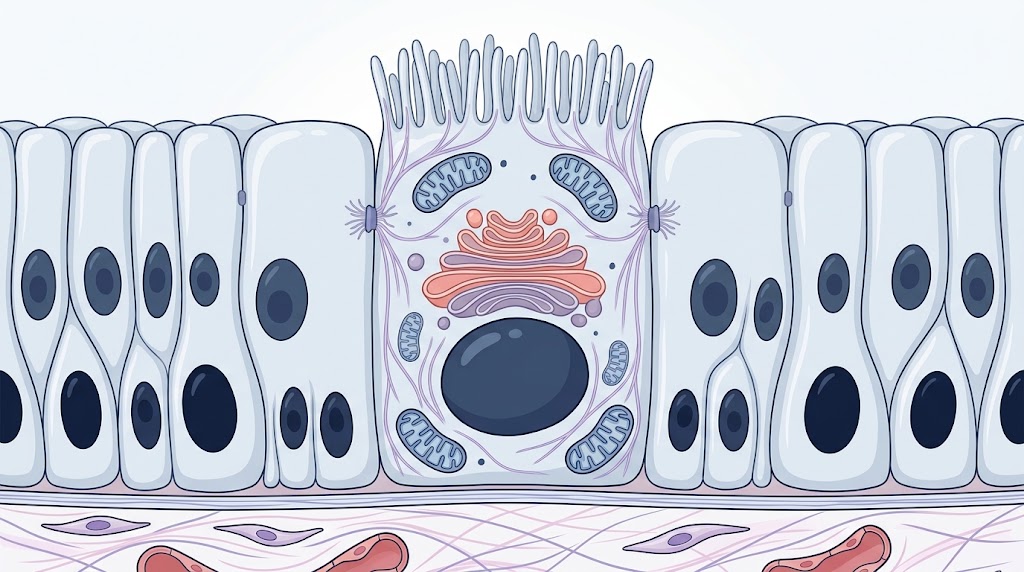
Otra característica fundamental es la polaridad. Cada célula epitelial puede dividirse conceptualmente en un dominio apical, un dominio lateral y un dominio basal. Cada uno contiene proteínas y estructuras distintas.
El dominio apical está orientado hacia la luz de una cavidad o hacia una superficie libre. En esta región pueden encontrarse especializaciones como microvellosidades, cilios o estereocilios. El dominio lateral contiene gran parte de las estructuras de adhesión entre células vecinas. El dominio basal establece contacto con la membrana basal y contiene proteínas especializadas relacionadas con anclaje, transporte y señalización.
La capacidad regenerativa constituye otra propiedad importante. Muchos epitelios están expuestos a fricción, sustancias químicas, microorganismos y daño físico, por lo que deben renovar continuamente sus células. La epidermis y el epitelio intestinal representan ejemplos particularmente claros de renovación intensa.
La velocidad de renovación varía de acuerdo con el órgano y el tipo de epitelio. Algunos epitelios pueden regenerarse rápidamente después de una lesión superficial, mientras que otros poseen un recambio más lento.
Avascularidad y nutrición del epitelio
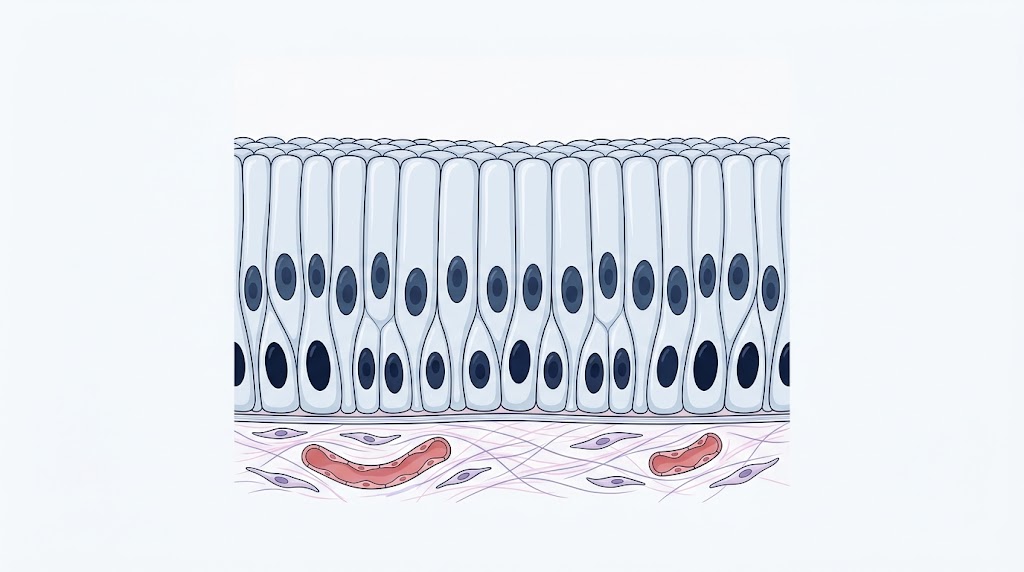
Los epitelios son tejidos avasculares. No existen capilares que atraviesen directamente las capas epiteliales normales. Esta característica resulta especialmente importante cuando se interpreta un corte histológico.
Los vasos sanguíneos se encuentran en el tejido conectivo subyacente. El oxígeno, los nutrientes y otras moléculas deben difundirse desde estos vasos a través de la matriz extracelular y de la membrana basal hasta alcanzar las células epiteliales.
La distancia de difusión impone límites fisiológicos. Los epitelios muy gruesos suelen estar diseñados principalmente para protección y no para intercambio rápido. En contraste, las superficies especializadas en difusión suelen poseer epitelios extremadamente delgados.
En los alvéolos pulmonares, por ejemplo, el intercambio de oxígeno y dióxido de carbono requiere una barrera mínima entre aire y sangre. Por eso gran parte del revestimiento alveolar está compuesto por neumocitos tipo I extraordinariamente aplanados.
En el endotelio capilar ocurre una lógica similar. El epitelio plano simple reduce la distancia necesaria para el intercambio.
En cambio, la epidermis posee numerosas capas celulares porque su prioridad no es la difusión rápida, sino la protección mecánica y química frente al ambiente.
Inervación del tejido epitelial
Aunque los epitelios carecen de vasos sanguíneos, muchos están ampliamente inervados. Terminaciones nerviosas sensitivas pueden penetrar o relacionarse estrechamente con ellos.
Esta inervación permite detectar tacto, temperatura, dolor y otros estímulos. Algunas estructuras epiteliales incluso se especializan en funciones sensoriales complejas.
La íntima relación entre epitelio y sistema nervioso resulta particularmente evidente en órganos sensoriales, aunque también desempeña funciones importantes en piel, mucosas y vísceras.
Polaridad celular
La polaridad es una de las características fundamentales de las células epiteliales. Significa que la célula posee regiones estructural y funcionalmente diferentes.
El dominio apical se orienta hacia el exterior del organismo o hacia la luz de un órgano. El dominio lateral se enfrenta a células vecinas y el dominio basal descansa sobre la membrana basal.
Esta organización no es meramente descriptiva. Permite realizar transporte vectorial.
Una célula intestinal, por ejemplo, puede captar determinados nutrientes mediante transportadores localizados en su superficie apical y liberarlos posteriormente hacia el intersticio mediante proteínas situadas en su región basolateral. Si ambos grupos de proteínas estuvieran distribuidos aleatoriamente por toda la membrana, el transporte dirigido sería mucho menos eficiente.
Las uniones estrechas contribuyen de manera decisiva al mantenimiento de esta polaridad porque restringen la difusión lateral de proteínas y lípidos dentro de la membrana plasmática.
Por ello, cuando un epitelio pierde su polaridad, también suele perder parte de su función especializada. La pérdida de polaridad es, de hecho, uno de los hallazgos que puede acompañar la transformación neoplásica.
Dominio apical
El dominio apical es la superficie celular que mira hacia la luz o hacia el ambiente externo. Su morfología depende directamente de la función del epitelio.
En superficies absortivas pueden encontrarse microvellosidades. En regiones dedicadas al transporte de material pueden existir cilios móviles. En ciertos órganos reproductores se observan estereocilios.
El dominio apical puede contener enzimas, canales iónicos, receptores y transportadores específicos. En el intestino delgado, por ejemplo, numerosas enzimas digestivas están asociadas con la superficie apical de los enterocitos.
En el aparato urinario, las células superficiales del urotelio contienen proteínas especializadas que reducen la permeabilidad al agua y a solutos presentes en la orina.
Cada especialización apical debe interpretarse como una adaptación funcional.
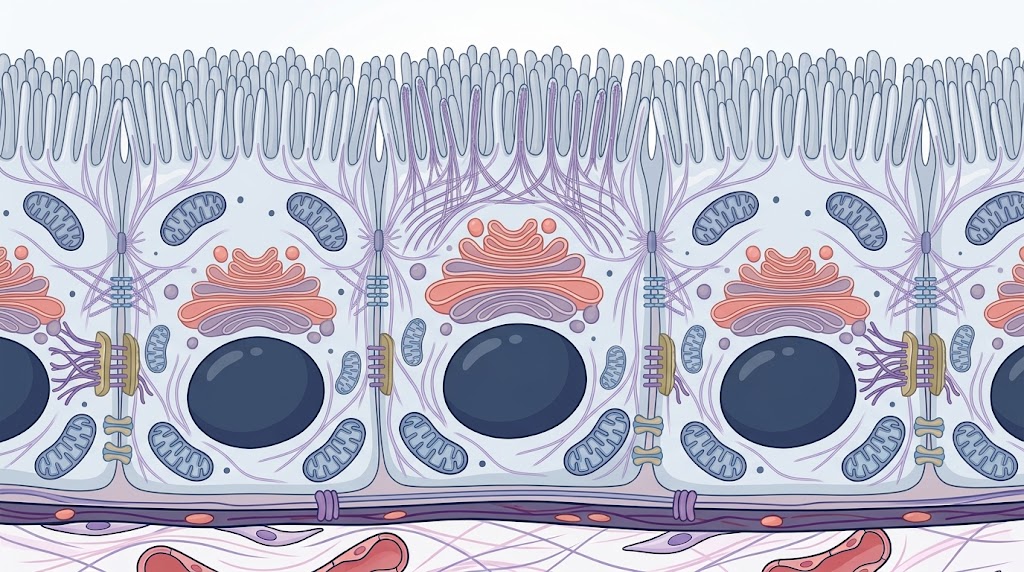
Microvellosidades
Las microvellosidades son prolongaciones digitiformes cortas de la membrana plasmática apical sostenidas internamente por filamentos de actina.
Su función principal consiste en aumentar la superficie disponible para absorción.
El ejemplo clásico se encuentra en el intestino delgado. Cada enterocito desarrolla numerosas microvellosidades, aumentando de manera extraordinaria el área de contacto con el contenido intestinal.
Al microscopio óptico, las microvellosidades intestinales forman una estructura denominada borde estriado. En los túbulos renales proximales pueden formar un borde en cepillo particularmente prominente.
El principio fisiológico es sencillo: cuanto mayor es la superficie disponible, mayor puede ser la capacidad total de transporte.
La relevancia clínica de estas estructuras se vuelve evidente cuando la superficie absortiva se pierde. En enfermedades caracterizadas por daño importante de la mucosa intestinal, la disminución funcional del área de absorción puede contribuir a malabsorción de nutrientes.
Estereocilios
A pesar de su nombre, los estereocilios no son cilios verdaderos. Son prolongaciones apicales largas, inmóviles y sostenidas por actina, por lo que estructuralmente se encuentran más relacionados con las microvellosidades.
Se observan de forma característica en el epidídimo y en determinadas células sensoriales del oído interno.
En el epidídimo aumentan el área de superficie disponible para absorción y secreción, participando en la modificación del líquido que rodea a los espermatozoides.
En el oído interno, estructuras relacionadas participan en la mecanotransducción sensorial.
Esta diferencia entre cilios y estereocilios es importante porque sus citoesqueletos y funciones son completamente diferentes.
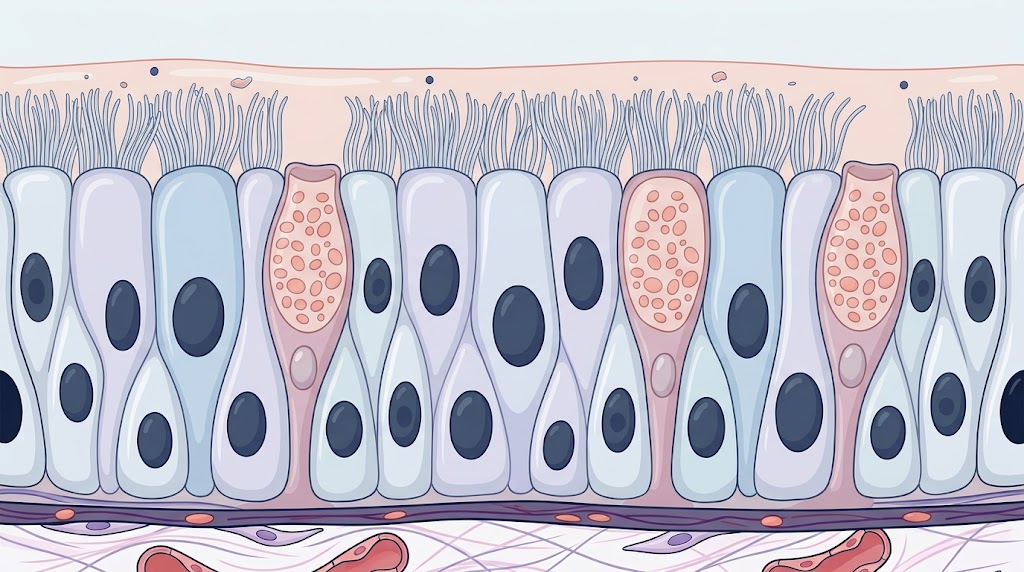
Cilios
Los cilios son prolongaciones apicales especializadas que contienen un armazón interno de microtúbulos denominado axonema.
Los cilios móviles presentan típicamente una organización de microtúbulos capaz de generar movimientos coordinados mediante proteínas motoras como la dineína.
En el aparato respiratorio, estos movimientos desplazan la capa de moco hacia la faringe. Las partículas inhaladas y numerosos microorganismos quedan atrapados en el moco y posteriormente son movilizados para su eliminación.
Este mecanismo constituye el sistema mucociliar y representa una de las principales defensas de las vías respiratorias.
Cuando la función ciliar está alterada, el aclaramiento de secreciones disminuye y aumenta la susceptibilidad a infecciones respiratorias.
Las alteraciones hereditarias de proteínas relacionadas con el movimiento ciliar pueden producir discinesia ciliar primaria. Los pacientes pueden presentar infecciones respiratorias recurrentes, sinusitis crónica y alteraciones reproductivas.
La estructura microscópica aparentemente pequeña de un cilio puede, por tanto, tener consecuencias clínicas sistémicas.
Dominio lateral y adhesión intercelular
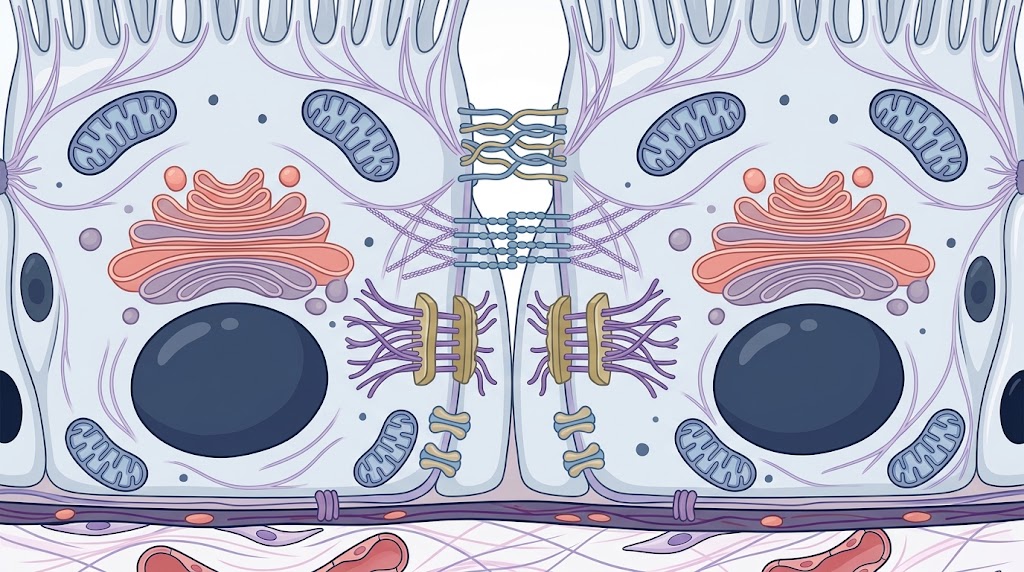
El dominio lateral de una célula epitelial establece contacto directo con células vecinas. En esta región se localizan numerosos complejos de unión.
Estas uniones cumplen funciones diferentes. Algunas controlan el paso de sustancias entre células, otras proporcionan adhesión mecánica y otras permiten comunicación intercelular.
La organización conjunta de estas estructuras transforma una colección de células individuales en una barrera coordinada y resistente.
Uniones estrechas
Las uniones estrechas, también llamadas zonulae occludentes, se localizan cerca del polo apical y forman una barrera entre células vecinas.
Proteínas transmembrana como claudinas y ocludina participan en la formación de estas estructuras.
Una de sus funciones consiste en limitar el paso paracelular de sustancias. Esto significa que pueden controlar hasta cierto grado qué moléculas atraviesan el espacio existente entre células.
Además, contribuyen a mantener la polaridad celular evitando que determinados componentes de la membrana apical se mezclen libremente con los de la membrana basolateral.
La permeabilidad de estas uniones varía considerablemente entre diferentes epitelios. Algunos son relativamente permeables y permiten un transporte paracelular significativo, mientras que otros forman barreras extremadamente restrictivas.
Uniones adherentes
Las uniones adherentes conectan el citoesqueleto de actina de células vecinas mediante proteínas de adhesión, especialmente cadherinas.
Estas estructuras permiten distribuir fuerzas mecánicas a lo largo del epitelio.
Su importancia es especialmente evidente en tejidos sometidos a deformación constante.
Las cadherinas también participan en mecanismos de reconocimiento y organización tisular. La pérdida de moléculas de adhesión puede facilitar cambios en el comportamiento celular y se ha relacionado con progresión tumoral en determinadas neoplasias.
Desmosomas
Los desmosomas proporcionan resistencia mecánica intensa al conectar filamentos intermedios de queratina entre células adyacentes.
Son particularmente abundantes en epitelios sometidos a fricción, como la epidermis.
Las proteínas desmosómicas incluyen desmogleínas y desmocolinas.
La importancia de estas estructuras puede apreciarse en enfermedades autoinmunes como el pénfigo, donde anticuerpos dirigidos contra componentes desmosómicos alteran la adhesión entre queratinocitos.
Cuando las células pierden cohesión aparece acantólisis y pueden formarse ampollas.
Este ejemplo demuestra cómo la histología molecular de una unión celular se transforma directamente en un mecanismo de enfermedad.
Uniones comunicantes
Las uniones comunicantes o gap junctions permiten el intercambio directo de pequeñas moléculas e iones entre células vecinas.
Están formadas por canales construidos a partir de conexinas.
Gracias a ellas, grupos celulares pueden coordinar respuestas metabólicas y eléctricas.
Aunque no proporcionan resistencia mecánica comparable a los desmosomas, poseen gran importancia funcional.
Dominio basal
El dominio basal es la región de la célula epitelial orientada hacia la membrana basal.
Aquí se localizan estructuras que permiten adherir la célula a la matriz extracelular, especialmente hemidesmosomas.
También pueden existir pliegues basales que aumentan la superficie disponible para transporte de sustancias.
Estos pliegues son particularmente importantes en células especializadas en transporte activo de iones y agua.
Hemidesmosomas
Los hemidesmosomas anclan las células epiteliales a la lámina basal.
A diferencia de los desmosomas, que unen una célula con otra, los hemidesmosomas conectan la célula con la matriz extracelular.
Las integrinas desempeñan un papel esencial en este proceso.
La relevancia clínica aparece de forma evidente en enfermedades ampollosas donde se altera la unión entre epidermis y membrana basal.
En el penfigoide ampolloso, por ejemplo, los autoanticuerpos afectan componentes asociados a hemidesmosomas, favoreciendo separación entre epitelio y tejido subyacente.
Membrana basal
La membrana basal es una estructura extracelular especializada situada entre el epitelio y el tejido conectivo.
No debe interpretarse únicamente como una lámina sobre la que descansan las células. Participa activamente en organización, señalización, filtración, reparación tisular y control del comportamiento celular.
Desde el punto de vista ultraestructural pueden distinguirse componentes producidos principalmente por las células epiteliales y otros relacionados con el tejido conectivo.
La lámina basal contiene moléculas como colágeno tipo IV, lamininas, nidógeno y proteoglucanos.
El colágeno tipo IV forma una red especializada distinta de las fibras de colágeno fibrilar observadas en tejido conectivo.
Las lamininas participan en adhesión y señalización mediante su interacción con receptores celulares.
La membrana basal también funciona como una barrera selectiva en algunos órganos.
En el glomérulo renal participa de manera decisiva en el sistema de filtración. Alteraciones de sus componentes pueden modificar profundamente la permeabilidad glomerular.
Durante la reparación tisular, una membrana basal relativamente conservada puede servir como guía para regeneración del epitelio.
En oncología, la ruptura de la membrana basal constituye un acontecimiento fundamental porque permite que células neoplásicas invadan el tejido conectivo subyacente.
Un carcinoma que permanece limitado por la membrana basal se considera in situ. Cuando las células atraviesan esta barrera y penetran el estroma, se establece invasión.
Esta diferencia histológica posee enorme importancia clínica.
Clasificación del tejido epitelial de revestimiento
Los epitelios de revestimiento se clasifican fundamentalmente según dos características: el número de capas celulares y la morfología de las células superficiales.
Cuando existe una sola capa celular se habla de epitelio simple. Cuando existen varias capas se denomina estratificado.
Existen además organizaciones particulares como el epitelio pseudoestratificado y el urotelio.
La forma de las células se describe habitualmente como plana, cúbica o cilíndrica.
En los epitelios estratificados, la clasificación morfológica se realiza utilizando las células de la superficie, no las células basales.
Comprender esta regla evita numerosos errores durante la interpretación microscópica.
Epitelio plano simple
El epitelio plano simple está compuesto por una sola capa de células extremadamente aplanadas.
Su arquitectura reduce al mínimo la distancia que las sustancias deben atravesar, por lo que resulta ideal para difusión, intercambio y filtración.
Este tipo de epitelio se encuentra en regiones donde una barrera gruesa sería funcionalmente perjudicial.
El endotelio vascular constituye un ejemplo especializado. Las células endoteliales recubren la superficie interna del sistema cardiovascular y participan activamente en regulación vascular, coagulación, inflamación y transporte.
Aunque durante mucho tiempo se consideró simplemente una capa pasiva, actualmente se reconoce al endotelio como un órgano funcional distribuido por todo el organismo.
En los alvéolos pulmonares también existe un revestimiento extremadamente delgado. Los neumocitos tipo I permiten disminuir la distancia entre aire alveolar y sangre capilar.
El mesotelio representa otra forma de epitelio plano simple. Recubre cavidades serosas como pleura, pericardio y peritoneo y proporciona una superficie lisa que reduce la fricción entre órganos.
La estructura de estos epitelios demuestra una regla fundamental de histología: cuando la función requiere intercambio rápido o deslizamiento, la arquitectura tiende a simplificarse y hacerse delgada.
Epitelio cúbico simple
El epitelio cúbico simple está formado por una sola capa de células cuya altura y anchura son aproximadamente similares.
Los núcleos suelen ser redondeados y ocupar una posición relativamente central.
Esta organización se encuentra frecuentemente en estructuras donde existen funciones combinadas de absorción, secreción y transporte.
Numerosos túbulos renales poseen epitelio cúbico simple. En ellos, la morfología puede variar según el segmento y el grado de especialización.
Las células del túbulo proximal, por ejemplo, poseen abundantes microvellosidades y numerosas mitocondrias debido a la intensidad de sus procesos de reabsorción.
Otros ejemplos pueden encontrarse en pequeños conductos glandulares y determinadas superficies del ovario.
Epitelio cilíndrico simple
El epitelio cilíndrico simple está compuesto por una sola capa de células más altas que anchas.
Los núcleos suelen ser ovalados y se sitúan en la mitad basal de las células.
Este tipo de epitelio aparece frecuentemente en superficies dedicadas a absorción y secreción.
El intestino constituye uno de los ejemplos más representativos. Los enterocitos son células cilíndricas especializadas para absorción y presentan microvellosidades apicales.
Entre los enterocitos aparecen células caliciformes productoras de mucinas. Cuando estas sustancias se hidratan forman moco, que lubrica y protege la superficie.
En otras regiones, el epitelio cilíndrico simple puede presentar cilios.
La trompa uterina, por ejemplo, contiene células ciliadas que contribuyen al transporte dentro de la luz.
Epitelio pseudoestratificado
El epitelio pseudoestratificado produce inicialmente la impresión de estar formado por múltiples capas porque sus núcleos se encuentran a diferentes alturas.
Sin embargo, todas las células están en contacto con la membrana basal.
No todas alcanzan necesariamente la superficie libre, lo que genera su aspecto aparentemente estratificado.
El ejemplo clásico es el epitelio respiratorio pseudoestratificado cilíndrico ciliado.
Este epitelio posee células ciliadas, células caliciformes y poblaciones celulares basales, entre otras.
Las células caliciformes producen moco y los cilios desplazan esa capa de moco hacia regiones superiores del aparato respiratorio.
Este sistema permite atrapar partículas y microorganismos inhalados antes de que alcancen regiones pulmonares más profundas.
El tabaquismo crónico puede producir modificaciones importantes en este epitelio. La exposición persistente a irritantes favorece metaplasia escamosa, mediante la cual el epitelio respiratorio especializado es reemplazado por uno estratificado más resistente.
Aunque esta transformación aumenta la resistencia mecánica frente a la agresión, también sacrifica la función mucociliar.
Esto demuestra que la adaptación tisular puede representar simultáneamente una ventaja y una pérdida funcional.
Epitelio plano estratificado
El epitelio plano estratificado está compuesto por múltiples capas celulares y se encuentra diseñado principalmente para resistir fricción.
Las células más superficiales son aplanadas, mientras que las células basales suelen ser cúbicas o cilíndricas y poseen mayor actividad proliferativa.
Puede dividirse en queratinizado y no queratinizado.
La variante queratinizada forma la epidermis. Sus células superficiales pierden progresivamente núcleo y organelos y se llenan de queratina, formando una barrera altamente resistente frente al ambiente.
La queratinización disminuye pérdida de agua y aumenta protección mecánica.
El epitelio plano estratificado no queratinizado se encuentra en superficies húmedas sometidas a fricción, como cavidad oral, esófago y vagina.
En estas regiones, las células superficiales permanecen nucleadas y la superficie se mantiene húmeda.
La comparación entre epidermis y esófago muestra cómo una misma arquitectura general puede modificarse según las demandas ambientales.
Epitelio cúbico estratificado
El epitelio cúbico estratificado es relativamente poco frecuente.
Suele encontrarse en conductos de algunas glándulas exocrinas, donde participa principalmente en protección y conducción.
Su importancia general es menor que la de los grandes grupos epiteliales, pero constituye una categoría histológica válida.
Epitelio cilíndrico estratificado
El epitelio cilíndrico estratificado también es poco frecuente.
Puede observarse en determinados conductos grandes y regiones de transición.
Su identificación requiere reconocer que las células superficiales poseen morfología cilíndrica.
Urotelio o epitelio de transición
El urotelio reviste parte importante del tracto urinario, incluyendo uréteres y vejiga.
Su característica fundamental es la capacidad de modificar su apariencia según el grado de distensión.
Cuando el órgano está relajado, el epitelio parece relativamente grueso y las células superficiales pueden observarse grandes y redondeadas.
Cuando la vejiga se distiende, las células cambian de forma y el espesor aparente disminuye.
Las células superficiales, conocidas como células paraguas, poseen una membrana apical altamente especializada que contiene uroplaquinas.
Estas proteínas contribuyen a formar una barrera extremadamente impermeable frente a la orina.
Esta función es esencial porque la orina puede presentar concentraciones de solutos muy diferentes a las del medio interno.
Sin una barrera eficiente, el contenido urinario modificaría continuamente el equilibrio del intersticio.
La capacidad del urotelio de combinar impermeabilidad y distensibilidad representa una adaptación histológica extraordinaria.
Relación entre forma y función
La clasificación del epitelio adquiere verdadero significado cuando se relaciona con la función.
Un epitelio plano simple favorece intercambio porque minimiza la distancia de difusión.
Un epitelio cúbico simple proporciona mayor volumen citoplasmático para transporte y síntesis.
Un epitelio cilíndrico simple puede alojar una maquinaria intracelular aún más desarrollada y especializaciones apicales complejas.
Un epitelio estratificado sacrifica eficiencia de difusión a cambio de resistencia.
El urotelio desarrolla una organización particular porque necesita soportar distensión sin perder impermeabilidad.
Por ello, durante el estudio microscópico conviene preguntarse siempre por qué determinado órgano posee determinado epitelio.
La histología deja de ser memorística cuando la morfología se interpreta como resultado de una necesidad fisiológica.
Epitelio glandular
El tejido epitelial no solamente forma superficies de revestimiento. También puede especializarse para secreción.
Las glándulas se originan durante el desarrollo a partir de proliferaciones de epitelios que penetran en el tejido conectivo.
Dependiendo de si mantienen o pierden su conexión con la superficie original, pueden convertirse en glándulas exocrinas o endocrinas.
Las glándulas exocrinas conservan un sistema de conductos que transporta su producto hacia una superficie.
Las glándulas endocrinas pierden esa conexión y liberan sus productos al intersticio, desde donde alcanzan los vasos sanguíneos.
Esta diferencia estructural refleja dos estrategias completamente distintas de distribución de sustancias.
Glándulas exocrinas
Las glándulas exocrinas producen sustancias que llegan a superficies epiteliales mediante conductos.
El producto puede incluir moco, enzimas, sudor, sebo, leche u otras secreciones.
Algunas glándulas exocrinas están formadas por una sola célula. La célula caliciforme constituye el ejemplo clásico. Produce mucinas que se hidratan y forman moco.
Las glándulas multicelulares presentan una porción secretora y un sistema de conductos.
La arquitectura del conducto y la forma de la unidad secretora permiten realizar clasificaciones adicionales.
Sin embargo, estas categorías no deben memorizarse de manera aislada. Su objetivo es describir cómo se organiza la glándula para producir, modificar y transportar una secreción.
Secreción merocrina
La secreción merocrina ocurre mediante exocitosis.
La célula libera el contenido de vesículas secretoras sin perder una porción significativa de su citoplasma.
Es probablemente el mecanismo más frecuente y se encuentra en numerosas glándulas.
Las células pancreáticas exocrinas, por ejemplo, liberan enzimas mediante este mecanismo.
Secreción apocrina
En la secreción apocrina, parte del producto se libera acompañada por una porción del citoplasma apical y de la membrana celular.
La glándula mamaria utiliza mecanismos apocrinos para algunos componentes de su secreción lipídica.
Secreción holocrina
La secreción holocrina implica destrucción completa de la célula secretora.
Las glándulas sebáceas representan el ejemplo clásico.
Las células acumulan producto, degeneran y finalmente forman parte de la secreción.
Este mecanismo requiere renovación continua de la población celular.
Glándulas endocrinas
Las glándulas endocrinas liberan sus productos hacia el medio interno.
Sus células suelen encontrarse estrechamente relacionadas con una red vascular abundante porque las hormonas deben alcanzar rápidamente la circulación.
La organización histológica puede adoptar cordones, agrupaciones o folículos dependiendo del órgano.
La glándula tiroides constituye un ejemplo particularmente interesante porque almacena material precursor de sus hormonas fuera de las células, dentro de folículos llenos de coloide.
En contraste, numerosas otras glándulas endocrinas almacenan sus productos intracelularmente o los sintetizan según la demanda.
Membrana basal y regeneración
La integridad de la membrana basal influye de manera importante en la capacidad regenerativa de los epitelios.
Cuando una lesión destruye células superficiales pero conserva la membrana basal y suficientes células progenitoras, la reparación puede ser relativamente organizada.
Las células proliferan, migran y restablecen progresivamente el revestimiento.
Cuando el daño destruye también la arquitectura de soporte, la reparación puede ser más compleja y favorecer fibrosis o cicatrización.
La interacción entre células epiteliales y matriz extracelular proporciona señales esenciales para proliferación, supervivencia y diferenciación.
Células madre y renovación epitelial
Muchos epitelios poseen poblaciones de células madre o progenitoras localizadas en nichos específicos.
Estas células mantienen la capacidad de dividirse y generar poblaciones diferenciadas.
En la epidermis, las células proliferativas se encuentran principalmente en regiones basales.
En el intestino, las células madre residen en las criptas y generan continuamente enterocitos, células caliciformes y otros tipos celulares.
Las células recién formadas migran mientras completan su diferenciación y finalmente son eliminadas.
La renovación intestinal es especialmente rápida debido a la exposición constante a enzimas, microorganismos y contenido luminal.
Esta dinámica demuestra que un epitelio aparentemente estable puede encontrarse en renovación continua.
Metaplasia
La metaplasia es una adaptación reversible en la que un tipo celular diferenciado es sustituido por otro más adecuado para soportar determinada agresión.
Un ejemplo clásico ocurre en el aparato respiratorio de fumadores.
El epitelio pseudoestratificado cilíndrico ciliado puede ser sustituido progresivamente por epitelio plano estratificado.
Este nuevo epitelio es más resistente frente a la agresión química, pero pierde cilios y gran parte de su función mucociliar.
El resultado es una superficie más resistente pero fisiológicamente menos especializada.
Otro ejemplo importante ocurre en el esófago distal durante exposición crónica al contenido gástrico. En el esófago de Barrett, el epitelio plano estratificado normal puede ser sustituido por un epitelio de características intestinales.
La metaplasia puede inicialmente tener una función adaptativa, pero la persistencia del estímulo puede incrementar el riesgo de cambios displásicos y neoplásicos.
Displasia
La displasia implica alteraciones del crecimiento y maduración celular.
Las células pueden presentar cambios en tamaño, forma, organización nuclear y orientación dentro del tejido.
La arquitectura normal comienza a perderse y pueden aumentar las mitosis.
La displasia no es sinónimo automático de cáncer invasor, pero representa una alteración preocupante y puede formar parte de una progresión hacia neoplasia.
En muchos epitelios existe un espectro que puede ir desde cambios adaptativos hasta displasia, carcinoma in situ e invasión.
Carcinoma y ruptura de la membrana basal
Las neoplasias malignas originadas en epitelios se denominan carcinomas.
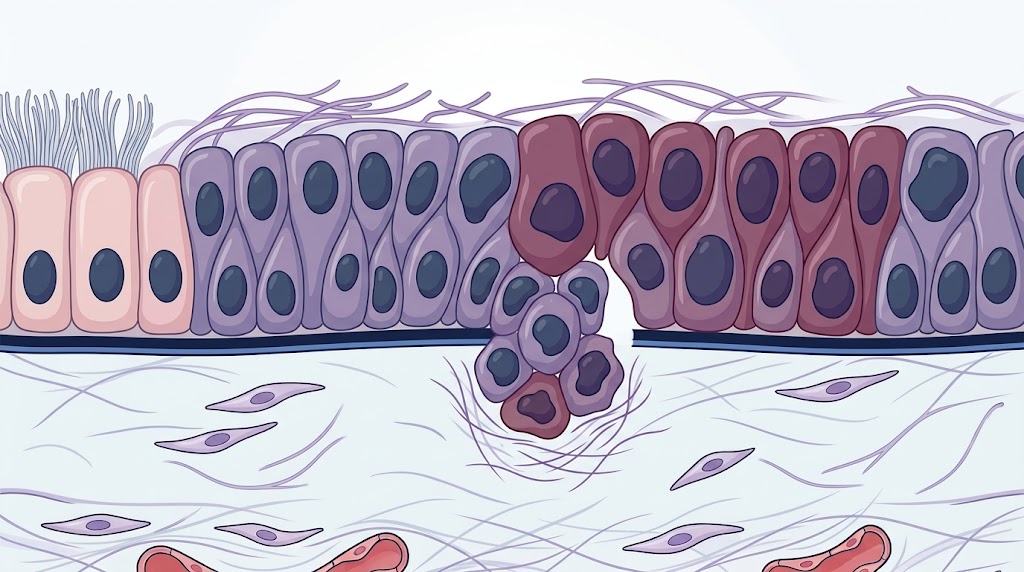
Durante las primeras etapas de transformación, las células neoplásicas pueden permanecer confinadas al epitelio.
Mientras la membrana basal permanezca intacta, la lesión puede clasificarse como carcinoma in situ dependiendo del órgano y del contexto histopatológico.
La transición hacia invasión ocurre cuando las células tumorales adquieren capacidad para atravesar la membrana basal e infiltrarse en el tejido conectivo.
Este cambio es fundamental porque el estroma contiene vasos sanguíneos y linfáticos que pueden proporcionar rutas para diseminación tumoral.
La ruptura de la membrana basal no es, por tanto, un detalle microscópico menor. Marca una transformación biológica fundamental.
Transición epitelio-mesénquima
Durante determinados procesos fisiológicos y patológicos, las células epiteliales pueden disminuir sus características de adhesión y polaridad y adquirir propiedades más migratorias.
Este fenómeno se conoce como transición epitelio-mesénquima.
Durante el desarrollo embrionario desempeña funciones esenciales.
En cáncer, programas moleculares relacionados pueden contribuir a invasión, migración y resistencia celular.
La pérdida de E-cadherina, reorganización del citoesqueleto y modificación de la interacción con la matriz extracelular forman parte de este cambio complejo.
Este concepto demuestra que la identidad epitelial no es completamente estática y depende de mecanismos moleculares de mantenimiento continuo.
Pénfigo
El pénfigo representa un excelente ejemplo de cómo las uniones intercelulares determinan la integridad de un epitelio.
En estas enfermedades, autoanticuerpos dirigidos contra proteínas desmosómicas alteran la adhesión entre queratinocitos.
La pérdida de cohesión produce acantólisis y formación de ampollas.
La localización de la separación dentro del epitelio depende del componente afectado.
Desde el punto de vista docente, el mecanismo permite comprender que una ampolla puede originarse simplemente porque una proteína de adhesión dejó de funcionar correctamente.
Penfigoide
En el penfigoide, los autoanticuerpos se dirigen contra componentes relacionados con la unión entre células basales y membrana basal.
La separación ocurre entonces en una región diferente a la observada en el pénfigo.
La comparación entre ambas enfermedades ayuda a distinguir desmosomas de hemidesmosomas.
El desmosoma conecta célula con célula.
El hemidesmosoma conecta célula con matriz.
Esta diferencia microscópica explica patrones clínicos diferentes de formación de ampollas.
Enfermedad celíaca
La absorción intestinal depende de una enorme superficie epitelial.
Los pliegues, vellosidades y microvellosidades aumentan progresivamente esa superficie.
En la enfermedad celíaca, la respuesta inmunológica frente al gluten en personas susceptibles produce lesión de la mucosa del intestino delgado y atrofia de las vellosidades.
La reducción de la superficie funcional contribuye directamente a la malabsorción.
Desde la perspectiva histológica, una modificación arquitectónica de la mucosa puede alterar de forma profunda la fisiología digestiva.
Discinesia ciliar primaria
La eliminación de secreciones respiratorias depende del movimiento coordinado de los cilios.
Cuando proteínas esenciales del axonema están alteradas, la motilidad ciliar disminuye.
Las secreciones se acumulan y aumenta la susceptibilidad a infecciones respiratorias recurrentes.
Las alteraciones ciliares también pueden afectar movilidad espermática y otros procesos dependientes de estructuras relacionadas.
La enfermedad demuestra que la función de un epitelio no depende exclusivamente de qué células contiene, sino también de la integridad de sus organelos especializados.
Epitelio respiratorio y tabaquismo
El aparato respiratorio ilustra de manera particularmente clara la adaptación epitelial al daño crónico.
En condiciones normales, el epitelio pseudoestratificado ciliado y las células productoras de moco forman un sistema eficiente de protección.
Las partículas inhaladas quedan atrapadas y son eliminadas mediante transporte mucociliar.
La exposición crónica al humo modifica este equilibrio.
El epitelio puede sufrir metaplasia escamosa y perder progresivamente especializaciones necesarias para el aclaramiento mucociliar.
Esto favorece retención de secreciones y modifica la respuesta frente a agentes infecciosos.
La persistencia del daño también incrementa el riesgo de alteraciones displásicas y neoplásicas.
Epitelio intestinal y absorción
El epitelio intestinal representa uno de los ejemplos más sofisticados de especialización funcional.
Una sola capa de células cilíndricas debe cumplir simultáneamente funciones de absorción, secreción, defensa y barrera.
Los enterocitos absorben nutrientes mediante una distribución altamente polarizada de transportadores.
Las células caliciformes producen moco.
Las uniones estrechas regulan la permeabilidad paracelular.
Las células inmunológicas subyacentes interactúan continuamente con el epitelio y con señales procedentes del contenido luminal.
La barrera intestinal, por tanto, no consiste simplemente en una pared física. Es un sistema dinámico formado por células epiteliales, moco, uniones, microbiota y mecanismos inmunológicos.
Cuando esta regulación se altera pueden modificarse tanto la absorción como la respuesta inflamatoria.
Epitelio renal
Los túbulos renales muestran cómo pequeñas diferencias histológicas reflejan enormes diferencias fisiológicas.
El túbulo proximal contiene células cúbicas con abundantes microvellosidades y numerosas mitocondrias.
Las microvellosidades aumentan el área para reabsorción y las mitocondrias proporcionan ATP para los procesos de transporte activo.
En otros segmentos tubulares la morfología cambia según las funciones predominantes.
La histología renal se vuelve considerablemente más sencilla cuando se interpreta cada epitelio en función del transporte que debe realizar.
Epitelio alveolar
La superficie alveolar está diseñada para intercambio gaseoso rápido.
Los neumocitos tipo I poseen una morfología extremadamente aplanada que permite cubrir gran parte de la superficie alveolar con un espesor mínimo.
Los neumocitos tipo II tienen una morfología diferente y producen surfactante pulmonar.
El surfactante reduce la tensión superficial y ayuda a mantener la estabilidad alveolar.
Estos dos tipos celulares muestran cómo un mismo epitelio puede contener poblaciones especializadas que cumplen funciones complementarias.
Endotelio
El endotelio es un epitelio plano simple especializado que reviste vasos sanguíneos y linfáticos.
Aunque su morfología es aparentemente simple, su fisiología es extraordinariamente compleja.
Las células endoteliales regulan permeabilidad vascular, tono vascular, hemostasia, adhesión leucocitaria y angiogénesis.
Durante procesos inflamatorios modifican la expresión de moléculas de adhesión y permiten que leucocitos atraviesen la pared vascular.
En condiciones normales contribuyen a mantener una superficie antitrombótica.
Cuando existe disfunción endotelial, pueden alterarse mecanismos relacionados con ateroesclerosis, hipertensión y enfermedad vascular.
Este ejemplo demuestra nuevamente que una célula aplanada no implica una célula funcionalmente simple.
Mesotelio
El mesotelio recubre cavidades serosas y superficies externas de determinados órganos.
Está compuesto por células planas que proporcionan una superficie lisa y favorecen el deslizamiento.
La producción de líquido seroso disminuye la fricción durante movimientos respiratorios, cardíacos y abdominales.
La inflamación de estas superficies puede producir pleuritis, pericarditis o peritonitis.
El epitelio como barrera inmunológica
Los epitelios participan activamente en inmunidad.
No son estructuras inertes que simplemente separan el organismo del ambiente.
Las células epiteliales expresan receptores capaces de reconocer señales microbianas y daño tisular.
Pueden producir citocinas, quimiocinas y péptidos antimicrobianos.
Además, interactúan con células del sistema inmune situadas en el tejido conectivo subyacente.
En piel, intestino y aparato respiratorio esta interacción resulta esencial porque estos órganos están constantemente expuestos al ambiente.
El mantenimiento de una barrera epitelial íntegra reduce la entrada indiscriminada de microorganismos y antígenos.
Cuando la barrera se altera, aumenta la interacción del sistema inmune con materiales normalmente restringidos a la superficie.
El epitelio y la microbiota
Algunas superficies epiteliales se encuentran colonizadas por comunidades microbianas complejas.
El intestino es el ejemplo más evidente.
El epitelio intestinal debe permitir coexistencia con microorganismos comensales mientras mantiene capacidad para responder frente a patógenos.
El moco, las uniones intercelulares, las secreciones antimicrobianas y la vigilancia inmunológica contribuyen a este equilibrio.
La relación epitelio-microbiota constituye actualmente una de las áreas más importantes de investigación biomédica.
Identificación microscópica del tejido epitelial
Cuando se observa una preparación histológica, la identificación debería comenzar localizando una superficie o una luz.
Posteriormente debe evaluarse cuántas capas celulares existen y qué forma presentan las células superficiales.
También conviene observar la posición y morfología de los núcleos, la existencia de cilios, microvellosidades aparentes, queratina o células secretoras.
El tejido conectivo inmediatamente subyacente proporciona otra referencia importante.
En muchos órganos, la transición entre epitelio y tejido conectivo es claramente visible debido a diferencias de celularidad y matriz extracelular.
Más que memorizar imágenes individuales, resulta útil desarrollar un algoritmo mental basado en estructura y función.
Si existe una sola capa extremadamente delgada, probablemente la función involucre intercambio.
Si existen múltiples capas, probablemente exista una necesidad de protección.
Si aparecen microvellosidades, debe pensarse en absorción.
Si existen cilios, debe considerarse transporte sobre la superficie.
Si las células cambian dramáticamente de aspecto según distensión, debe considerarse urotelio.
Esta forma de razonamiento convierte la identificación histológica en un proceso lógico.
Importancia de la matriz extracelular subyacente
Aunque el epitelio posee muy poca matriz extracelular entre sus propias células, depende profundamente del tejido conectivo que se encuentra debajo.
Este compartimento proporciona soporte mecánico, vasos sanguíneos, células inmunológicas y señales bioquímicas.
El epitelio y el estroma mantienen una comunicación bidireccional constante.
Durante el desarrollo, interacciones epitelio-mesénquima determinan la formación de numerosos órganos.
Durante la reparación, señales procedentes del tejido conectivo modifican proliferación y diferenciación epitelial.
En tumores, el microambiente estromal puede influir en crecimiento, angiogénesis e invasión.
Por tanto, estudiar epitelio de manera completamente aislada del tejido conectivo proporciona una visión incompleta.
Queratinización
La queratinización constituye una especialización particularmente importante del epitelio plano estratificado de la epidermis.
A medida que los queratinocitos migran desde capas profundas hacia la superficie, experimentan un programa progresivo de diferenciación.
Cambian su expresión de proteínas, acumulan queratinas, modifican sus membranas y finalmente forman una capa altamente resistente.
Las células más superficiales pierden núcleo y organelos.
Este proceso genera una barrera mecánica y reduce la pérdida de agua.
La epidermis, por tanto, no es simplemente un epitelio de muchas capas. Es un sistema de diferenciación continua donde las células cambian profundamente durante su desplazamiento hacia la superficie.
Mucosas
Una mucosa está formada por un epitelio y el tejido conectivo subyacente denominado lámina propia.
En diferentes órganos pueden existir componentes adicionales, pero esta relación básica resulta fundamental.
La composición del epitelio depende de la función.
El esófago requiere protección frente a fricción y utiliza epitelio plano estratificado no queratinizado.
El intestino necesita absorción y utiliza epitelio cilíndrico simple.
El aparato respiratorio necesita transporte mucociliar y utiliza en gran parte epitelio pseudoestratificado ciliado.
De nuevo, la función determina la arquitectura.
Adaptación epitelial y homeostasis
Los epitelios existen en un estado de equilibrio dinámico.
Las células se pierden, se reemplazan, reciben señales ambientales, interactúan con microorganismos y responden a hormonas, citocinas y fuerzas mecánicas.
La homeostasis requiere equilibrio entre proliferación, diferenciación y muerte celular.
Si la proliferación es insuficiente, la barrera puede deteriorarse.
Si es excesiva o pierde regulación, puede aparecer hiperplasia o neoplasia.
Si la diferenciación cambia persistentemente, puede desarrollarse metaplasia.
Si la organización celular se vuelve anormal, puede aparecer displasia.
La histología normal constituye, por tanto, la referencia indispensable para reconocer enfermedad.
Importancia clínica del tejido epitelial
El enorme número de enfermedades relacionadas con epitelios refleja su distribución por todo el organismo.
Infecciones, inflamación, enfermedades autoinmunes, alteraciones genéticas, toxicidad y neoplasias pueden comprometerlos.
La piel puede formar ampollas cuando fallan sus mecanismos de adhesión.
El intestino puede perder capacidad absortiva cuando se destruye su arquitectura.
El aparato respiratorio puede perder aclaramiento mucociliar cuando los cilios dejan de funcionar.
La vejiga puede perder impermeabilidad cuando se altera el urotelio.
El riñón puede modificar filtración y transporte cuando se dañan epitelios especializados.
Las células neoplásicas pueden adquirir capacidad invasiva cuando atraviesan la membrana basal.
Por ello, comprender epitelio significa comprender una enorme proporción de la fisiopatología humana.
Conclusión
El tejido epitelial constituye una de las formas de organización celular más importantes del organismo humano. Su aparente simplicidad microscópica esconde un sistema altamente especializado donde polaridad, adhesión, membrana basal, citoesqueleto, especializaciones de superficie y renovación celular interactúan para mantener funciones esenciales.
Los epitelios permiten establecer barreras entre compartimentos, controlar el transporte de sustancias, absorber nutrientes, producir secreciones, movilizar material sobre superficies, detectar estímulos y proteger al organismo frente al ambiente.
La clasificación en epitelios simples, estratificados, pseudoestratificados y de transición adquiere verdadero significado cuando se relaciona con la función. Un epitelio plano simple reduce la distancia de difusión; un epitelio cilíndrico con microvellosidades aumenta capacidad de absorción; un epitelio ciliado transporta material; un epitelio estratificado resiste fricción y el urotelio mantiene impermeabilidad mientras tolera cambios de volumen.
Las uniones intercelulares permiten que las células funcionen como una barrera integrada. Las uniones estrechas regulan permeabilidad y contribuyen a polaridad; los desmosomas proporcionan resistencia mecánica; los hemidesmosomas anclan el epitelio a la membrana basal y las uniones comunicantes permiten coordinación intercelular.
La membrana basal constituye mucho más que una estructura de soporte. Participa en adhesión, filtración, señalización y regeneración y representa una frontera crítica en patología tumoral.
El estudio del epitelio también permite integrar histología con clínica. Pénfigo, penfigoide, enfermedad celíaca, discinesia ciliar, metaplasia respiratoria, esófago de Barrett y carcinomas pueden comprenderse mucho mejor cuando se conocen las estructuras normales que resultan alteradas.
Finalmente, la idea fundamental del tejido epitelial es la relación entre estructura y función. La forma de las células, el número de capas, las especializaciones apicales y la naturaleza de sus uniones no son características arbitrarias. Cada una refleja las exigencias fisiológicas del órgano donde se encuentra.
Por ello, aprender histología epitelial no debería consistir en memorizar una colección de fotografías microscópicas. El objetivo es observar una organización celular y ser capaz de deducir qué función realiza, qué fuerzas debe soportar, qué sustancias debe transportar y qué ocurrirá cuando esa arquitectura pierda su integridad.
Ese razonamiento constituye la base para comprender posteriormente la histología de prácticamente todos los órganos y sistemas del cuerpo humano.
Aprende la función del tejido epitelial paso a paso en E-Vantis y lleva tu razonamiento clínico al siguiente nivel.