Introducción
La gastrulación constituye uno de los acontecimientos más importantes de todo el desarrollo humano. Hasta este momento, el embrión posee una organización relativamente sencilla. Durante la segunda semana se ha establecido un disco embrionario bilaminar formado por epiblasto e hipoblasto, acompañado por estructuras extraembrionarias que permiten implantación, nutrición inicial y comunicación con el organismo materno. Sin embargo, esa estructura todavía no contiene el plan corporal definitivo del individuo.
Durante la tercera semana ocurre una transformación radical.
Las células del epiblasto comienzan a desplazarse, modificar sus relaciones intercelulares, migrar hacia regiones específicas y diferenciarse. Como consecuencia de estos movimientos aparece el disco embrionario trilaminar, formado por ectodermo, mesodermo y endodermo. Estas tres capas germinales constituirán la base a partir de la cual se originarán prácticamente todos los tejidos y órganos del organismo.
La gastrulación tampoco debe entenderse simplemente como “la formación de tres capas”. Durante este proceso comienzan a establecerse los principales ejes corporales, se determina qué regiones serán craneales y caudales, derechas e izquierdas, dorsales y ventrales, se forma la notocorda y se generan señales moleculares que posteriormente dirigirán procesos como neurulación, somitogénesis y organogénesis.
En otras palabras, antes de la gastrulación existe un grupo relativamente organizado de células embrionarias. Después de la gastrulación existe un embrión cuyo plan corporal fundamental ya comienza a estar definido.
Esta diferencia explica por qué errores ocurridos durante esta etapa pueden tener consecuencias extraordinariamente graves. Alteraciones de migración celular, especificación del mesodermo, formación de la línea primitiva o establecimiento de los ejes corporales pueden generar malformaciones mayores, defectos de lateralidad e incluso incompatibilidad con el desarrollo normal.
Comprender la gastrulación permite conectar embriología celular, anatomía, biología molecular y patología congénita. No es únicamente uno de los temas más importantes de Embriología; constituye uno de los mejores ejemplos de cómo movimientos celulares microscópicos pueden terminar determinando la arquitectura completa del cuerpo humano.
¿Qué es la gastrulación?
La gastrulación es el proceso mediante el cual el disco embrionario bilaminar se transforma en un disco embrionario trilaminar mediante movimientos, migración y diferenciación de células procedentes principalmente del epiblasto.
El resultado fundamental es la aparición de las tres capas germinales definitivas: ectodermo, mesodermo y endodermo.
Sin embargo, esta definición debe interpretarse con cuidado. No se trata simplemente de que aparezcan tres capas donde anteriormente existían dos. Las células deben abandonar posiciones determinadas, atravesar regiones específicas del epiblasto, modificar sus mecanismos de adhesión, adquirir capacidad migratoria y desplazarse siguiendo gradientes moleculares.
Por ello, la gastrulación constituye un proceso altamente coordinado de reorganización celular.
En humanos comienza aproximadamente al inicio de la tercera semana del desarrollo, alrededor del día 15 después de la fecundación, aunque los acontecimientos embriológicos deben entenderse como procesos continuos y no como cambios que ocurren de manera instantánea en una fecha exacta.
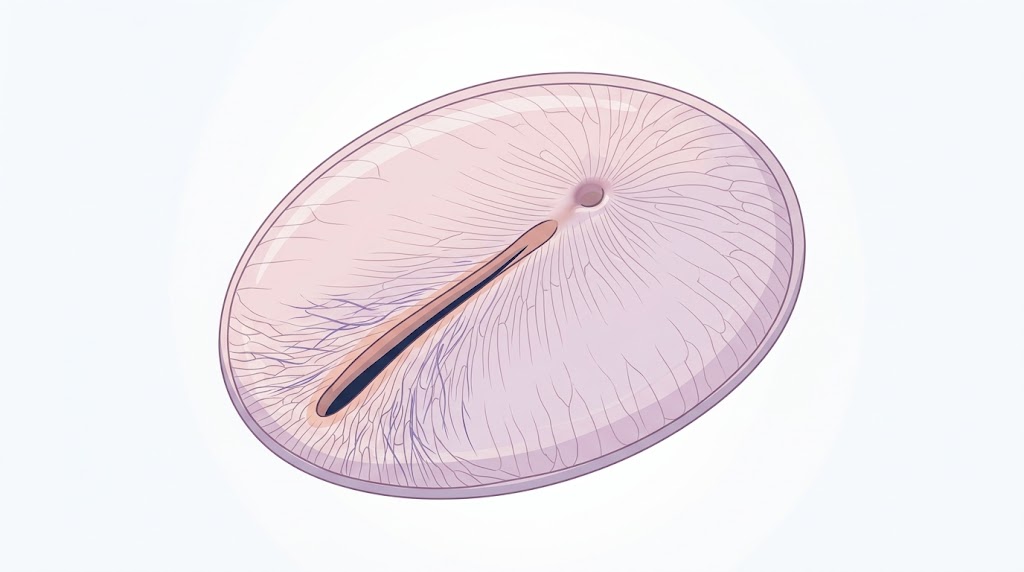
El primer signo morfológico evidente de gastrulación es la aparición de la línea primitiva sobre la superficie dorsal del epiblasto.
A partir de este momento se establece una región por la cual las células epiblásticas comenzarán a ingresar hacia el interior del disco embrionario.
El embrión antes de la gastrulación
Para entender la magnitud del cambio es necesario recordar cómo se encuentra organizado el embrión al final de la segunda semana.
El embrioblasto se ha diferenciado en dos capas principales. La capa superior está formada por células cilíndricas del epiblasto y la inferior por células del hipoblasto. Juntas constituyen el disco embrionario bilaminar.
Por encima del epiblasto se encuentra la cavidad amniótica. Por debajo del hipoblasto se relaciona la cavidad del saco vitelino.
En este momento el embrión todavía es extremadamente pequeño, pero ya existe cierta organización espacial. Una región craneal puede comenzar a reconocerse gracias a estructuras como la placa precordal.
El epiblasto posee una importancia fundamental porque las células de las tres capas germinales definitivas se originarán a partir de él.
Este concepto merece especial énfasis.
Aunque antes de la gastrulación existen epiblasto e hipoblasto, las tres capas germinales del embrión propiamente dicho derivan del epiblasto.
Las células epiblásticas que migran primero reemplazarán al hipoblasto y formarán el endodermo definitivo. Otras células quedarán entre endodermo y epiblasto para formar mesodermo. Las células epiblásticas que permanecen en la superficie se convertirán en ectodermo.
Por tanto, la gastrulación reorganiza una sola población celular inicial en tres compartimentos embrionarios con destinos completamente diferentes.
Inicio de la tercera semana del desarrollo
El comienzo de la tercera semana marca una transición crítica.
Durante las primeras etapas, gran parte del esfuerzo biológico del concepto estuvo dirigido a segmentación, formación del blastocisto, implantación y organización de estructuras extraembrionarias. A partir de la gastrulación, el desarrollo comienza a orientarse mucho más claramente hacia la construcción del cuerpo embrionario.
Este periodo coincide también con modificaciones significativas en la interacción entre embrión y tejidos extraembrionarios.
El mesodermo intraembrionario comenzará a organizarse en regiones definidas. Poco después se establecerán estructuras precursoras del sistema musculoesquelético, aparato cardiovascular, aparato urogenital y membranas serosas.
La notocorda comenzará a desempeñar funciones inductoras sobre el ectodermo.
La región neural se definirá.
Los primeros vasos y células sanguíneas aparecerán en etapas próximas.
Así, la gastrulación puede considerarse el punto de transición entre una organización embrionaria temprana y el inicio de la verdadera construcción anatómica del organismo.
Aparición de la línea primitiva
El signo morfológico característico del inicio de la gastrulación es la formación de la línea primitiva.
Se desarrolla en la superficie del epiblasto, inicialmente en la región caudal del disco embrionario. Las células epiblásticas proliferan y convergen hacia la línea media, formando una estructura longitudinal.
La aparición de esta línea representa mucho más que una modificación microscópica del epitelio.
A partir de ella queda establecido de manera mucho más clara el eje craneocaudal del embrión.
En su extremo craneal se forma una región especializada denominada nodo primitivo. En el centro de la línea existe un surco, el surco primitivo, y en el nodo puede observarse una depresión denominada fosita primitiva.
Estas estructuras funcionan como regiones de ingreso de células epiblásticas hacia capas más profundas.
La línea primitiva se convierte entonces en una auténtica puerta de entrada para la reorganización embrionaria.
El nodo primitivo
El nodo primitivo ocupa una posición central en la organización inicial del embrión.
Se localiza en el extremo craneal de la línea primitiva y constituye una región especializada desde la cual migran células que participarán en la formación de estructuras axiales.
A través de esta región ingresan células que contribuirán, entre otras estructuras, al proceso notocordal.
Además, el nodo actúa como un importante centro de señalización.
La embriología moderna ha demostrado que el desarrollo temprano no depende únicamente de la posición física de las células. Las células intercambian señales continuamente mediante proteínas, receptores y factores de transcripción.
El nodo participa en esta red de señalización y contribuye al establecimiento del eje corporal y de la lateralidad.
Por esta razón, debe considerarse tanto una estructura morfológica como un centro organizador del desarrollo.
Transición epitelio-mesénquima
Para abandonar el epiblasto, las células deben cambiar profundamente su comportamiento.
Inicialmente, las células epiblásticas forman parte de una capa epitelial organizada. Están unidas entre sí y poseen polaridad.
Cuando se aproximan a la línea primitiva disminuyen algunas de sus uniones celulares, modifican moléculas de adhesión y adquieren capacidad para migrar individualmente.
Este cambio se denomina transición epitelio-mesénquima.
Las células dejan de comportarse como componentes inmóviles de una lámina epitelial y adquieren características mesenquimatosas, incluyendo mayor movilidad y capacidad de desplazarse a través del espacio extracelular.
Este fenómeno posee enorme importancia biológica.
La transición epitelio-mesénquima participa en numerosos procesos normales del desarrollo. Conceptos relacionados también aparecen posteriormente en reparación tisular, fibrosis y biología tumoral.
Durante la gastrulación, este cambio permite literalmente que el embrión reorganice su arquitectura tridimensional.
Ingreso de células a través de la línea primitiva
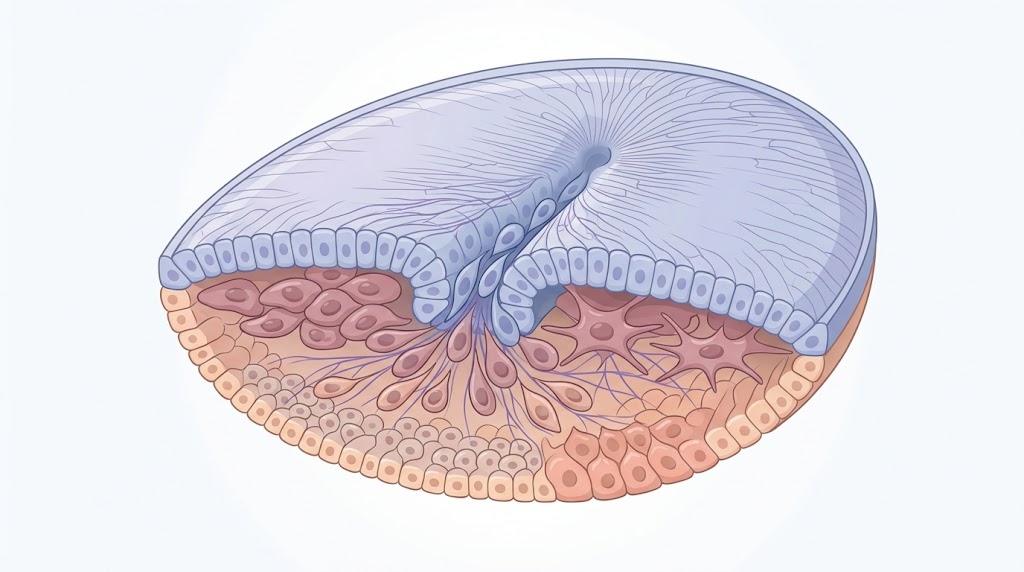
Las células epiblásticas convergen hacia la línea primitiva y comienzan a invaginarse.
No todas las células que atraviesan la línea tendrán el mismo destino.
Las primeras células migratorias penetran hacia la región inferior del disco y desplazan progresivamente a las células del hipoblasto.
Estas células formarán el endodermo definitivo.
Posteriormente, otras células ingresan y se distribuyen entre el nuevo endodermo y el epiblasto superficial. Estas células formarán el mesodermo intraembrionario.
Finalmente, las células que permanecen en el epiblasto sin atravesar la línea primitiva se convierten en ectodermo.
Así se forma el disco embrionario trilaminar.
Esta secuencia es fundamental porque demuestra que ectodermo, mesodermo y endodermo no aparecen simultáneamente por simple división horizontal del disco. Son consecuencia de movimientos celulares organizados.
Formación del endodermo definitivo
Las primeras células epiblásticas que atraviesan la línea primitiva migran hacia la región profunda del disco embrionario.
Al llegar a esta posición desplazan y sustituyen progresivamente las células del hipoblasto.
La nueva capa formada recibe el nombre de endodermo definitivo.
La distinción entre hipoblasto y endodermo definitivo es importante.
El hipoblasto participa principalmente en estructuras relacionadas con el saco vitelino y no representa el origen principal del endodermo del embrión propiamente dicho.
El endodermo definitivo, en cambio, deriva del epiblasto y contribuirá posteriormente a formar numerosos revestimientos epiteliales internos.
Entre sus derivados más importantes se encuentran gran parte del epitelio del aparato digestivo y respiratorio, además del parénquima epitelial de diversas glándulas asociadas a estos sistemas.
Esta nueva capa constituye la superficie ventral del disco embrionario trilaminar.
Formación del mesodermo intraembrionario
Después de establecerse el endodermo definitivo, nuevas células epiblásticas atraviesan la línea primitiva y se sitúan entre el ectodermo superficial y el endodermo.
Estas células constituyen el mesodermo intraembrionario.
Posteriormente, el mesodermo se expandirá lateral y cranealmente y se organizará en regiones con destinos específicos.
El mesodermo tendrá una importancia extraordinaria en el desarrollo humano.
De él derivarán numerosos componentes del sistema musculoesquelético, tejido conectivo, gran parte del aparato cardiovascular, serosas, aparato urogenital y otras estructuras.
Sin embargo, sería incorrecto pensar que todo el mesodermo constituye una masa uniforme.
Durante etapas posteriores se organizará en mesodermo paraxial, intermedio y lateral, cada uno relacionado con conjuntos diferentes de estructuras.
La gastrulación establece el material celular; la diferenciación posterior transformará ese material en territorios anatómicos especializados.
Formación del ectodermo
Después de que las células destinadas a endodermo y mesodermo han ingresado a través de la línea primitiva, las células que permanecen en la superficie del epiblasto reciben el nombre de ectodermo.
Esta capa ocupará la superficie dorsal del disco embrionario.
Posteriormente, señales procedentes de estructuras axiales como la notocorda modificarán determinadas regiones del ectodermo.
Una parte se diferenciará en neuroectodermo y dará origen al sistema nervioso central.
Otras regiones contribuirán a epidermis y estructuras relacionadas.
Durante neurulación aparecerán también las células de la cresta neural, una población extraordinariamente importante que migrará por gran parte del embrión y generará estructuras diversas.
Por tanto, el ectodermo producido durante la gastrulación establece el sustrato sobre el cual comenzará inmediatamente uno de los siguientes grandes procesos embrionarios: la neurulación.
El disco embrionario trilaminar
Al terminar las etapas fundamentales de la gastrulación, el embrión está constituido por tres capas principales.
El ectodermo ocupa la superficie dorsal.
El endodermo ocupa la superficie ventral.
Entre ambas se localiza el mesodermo intraembrionario.
Aunque esta descripción parece sencilla, representa una transformación biológica enorme.
A partir de estas tres capas se desarrollarán tejidos completamente diferentes.
Sin embargo, no debe interpretarse cada capa como un conjunto de células predestinadas de manera rígida desde el primer instante. El destino celular depende de combinaciones de señales moleculares, posición espacial, momento de migración e interacción con células vecinas.
La formación del disco trilaminar establece posibilidades de diferenciación; las etapas posteriores refinarán progresivamente esos destinos.
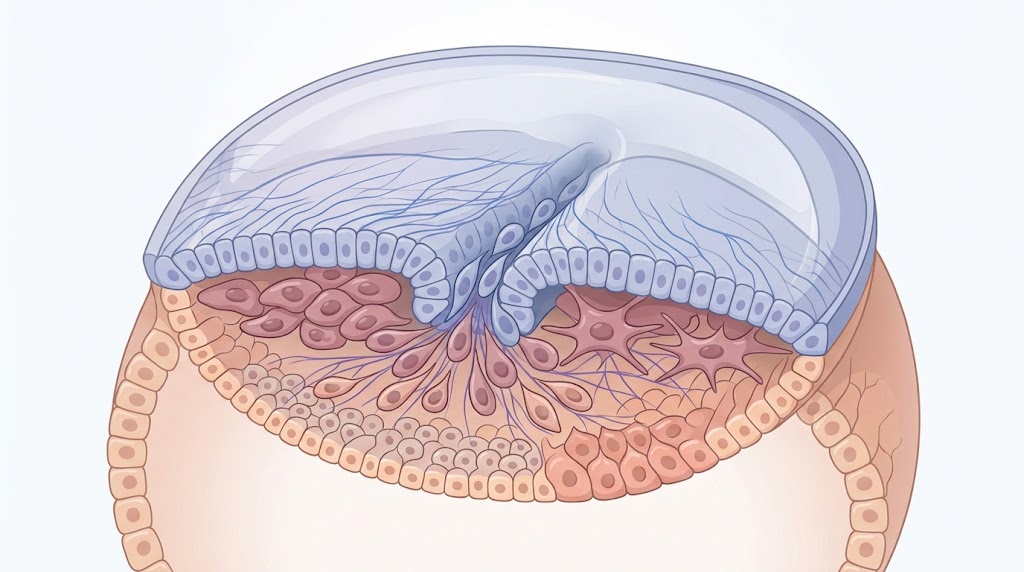
¿Qué deriva del ectodermo?
El ectodermo dará origen a estructuras relacionadas principalmente con el sistema nervioso y con superficies externas del organismo, aunque sus derivados son considerablemente más diversos.
A partir del ectodermo superficial se desarrollan epidermis y numerosos anexos cutáneos.
A partir del neuroectodermo se formarán estructuras fundamentales del sistema nervioso central.
Las células de la cresta neural tendrán destinos todavía más amplios, incluyendo gran parte del sistema nervioso periférico, melanocitos, células de la médula suprarrenal y diversos componentes craneofaciales.
Esto demuestra por qué estudiar simplemente “ectodermo igual a piel y sistema nervioso” resulta insuficiente.
La subdivisión posterior del ectodermo es esencial para comprender su verdadera contribución al organismo.
¿Qué deriva del mesodermo?
El mesodermo genera una proporción extraordinaria de los tejidos estructurales y sistemas internos del cuerpo.
A medida que avanza el desarrollo se diferencia en regiones.
El mesodermo paraxial dará origen a somitas, estructuras que posteriormente contribuirán a vértebras, musculatura esquelética y dermis de determinadas regiones.
El mesodermo intermedio tendrá una relación estrecha con el desarrollo del aparato urogenital.
El mesodermo de la placa lateral participará en formación de paredes corporales, extremidades, sistema cardiovascular y membranas serosas, entre otras estructuras.
Además, el mesodermo está íntimamente relacionado con la formación temprana de vasos y sangre.
Por ello, los movimientos celulares que generan mesodermo durante gastrulación tendrán consecuencias sobre una enorme cantidad de órganos.
¿Qué deriva del endodermo?
El endodermo participa principalmente en la formación de revestimientos epiteliales internos.
El tubo digestivo embrionario se originará en gran medida a partir de endodermo después del plegamiento del embrión.
De él derivará gran parte del epitelio gastrointestinal y epitelios asociados con aparatos respiratorio y digestivo.
También contribuirá al componente epitelial de órganos glandulares importantes.
Sin embargo, es necesario diferenciar entre el epitelio de un órgano y sus componentes conectivos o musculares.
Por ejemplo, una estructura puede poseer epitelio derivado del endodermo, mientras que su tejido conectivo, músculo y vasos proceden predominantemente del mesodermo.
Esta integración de capas germinales distintas será una característica recurrente de la organogénesis.
Regiones donde no aparece mesodermo
Aunque el mesodermo se distribuye entre ectodermo y endodermo en gran parte del disco embrionario, existen regiones donde ambas capas permanecen directamente unidas.
Dos regiones son especialmente importantes: la membrana orofaríngea y la membrana cloacal.
En estas zonas no existe mesodermo interpuesto.
La membrana orofaríngea se localiza en la región craneal y marcará una región relacionada con la futura apertura de la cavidad oral.
La membrana cloacal se encuentra en la región caudal y está relacionada con futuras aberturas de los sistemas digestivo y urogenital.
Estas membranas constituyen importantes puntos de referencia anatómicos durante el desarrollo temprano.
Formación de la notocorda
Uno de los acontecimientos más importantes asociados con la gastrulación es la formación de la notocorda.
Células que ingresan a través del nodo primitivo migran cranealmente por la línea media y forman inicialmente el proceso notocordal.
A través de una secuencia de modificaciones este proceso terminará generando la notocorda definitiva.
La notocorda se extiende longitudinalmente en la línea media embrionaria y constituye un eje estructural fundamental.
En humanos no formará la columna vertebral definitiva. Sin embargo, desempeña un papel esencial como estructura inductora y organizadora.
La notocorda envía señales al ectodermo suprayacente que favorecen diferenciación del neuroectodermo y formación de la placa neural.
También participa en la organización de tejidos mesodérmicos adyacentes.
Posteriormente, gran parte de la notocorda desaparecerá conforme se forman los cuerpos vertebrales, aunque persisten restos relacionados con el núcleo pulposo de los discos intervertebrales.
Por ello, su función más importante durante el desarrollo no es convertirse en un gran órgano adulto, sino organizar procesos embrionarios posteriores.
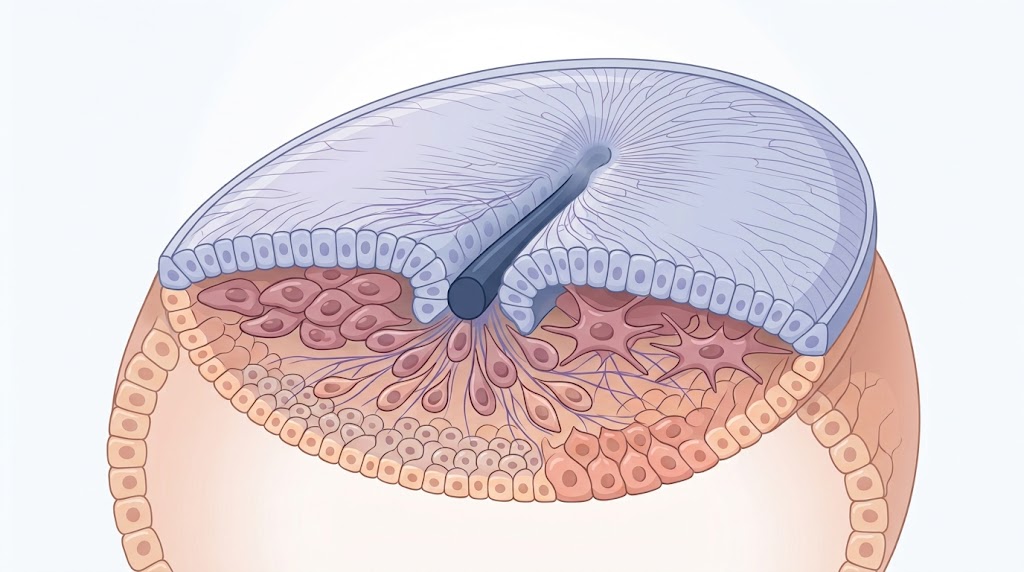
Proceso notocordal
La formación de la notocorda ocurre mediante varias etapas.
Las células procedentes del nodo migran cranealmente y generan una estructura tubular denominada proceso notocordal.
Este se extiende hacia la región craneal hasta aproximarse a la placa precordal.
Posteriormente su piso puede fusionarse temporalmente con el endodermo subyacente.
Como consecuencia aparecen transformaciones que producen una placa notocordal.
Finalmente, esta placa se repliega y se separa del endodermo para formar la notocorda sólida definitiva.
Este proceso demuestra nuevamente que las estructuras embrionarias no aparecen de forma instantánea. Se transforman mediante etapas intermedias que reflejan cambios de adhesión y morfología celular.
Canal neuroentérico
Durante una etapa transitoria puede existir comunicación entre la cavidad amniótica y el saco vitelino a través de la región del nodo primitivo.
Esta comunicación recibe el nombre de canal neuroentérico.
Su presencia es temporal.
Aunque no genera una estructura adulta permanente, constituye un ejemplo importante de los cambios tridimensionales que ocurren durante la formación notocordal.
Comprender estas relaciones espaciales ayuda a interpretar algunas anomalías congénitas complejas relacionadas con defectos de separación entre sistemas embrionarios.
Placa precordal
En la región craneal del embrión existe una población celular especializada denominada placa precordal.
Esta región participa en la organización del extremo cefálico.
Sus señales tienen importancia en el desarrollo del prosencéfalo y de estructuras craneofaciales.
Las alteraciones de señales provenientes de regiones axiales craneales pueden relacionarse con defectos graves del desarrollo de la línea media.
Por ello, la organización craneal durante gastrulación posee consecuencias directas sobre la formación posterior del encéfalo y la cara.
Establecimiento de los ejes corporales
Uno de los efectos más profundos de la gastrulación es establecer la organización espacial del organismo.
El cuerpo humano posee un eje craneocaudal, un eje dorsoventral y un eje izquierda-derecha.
Estas relaciones parecen obvias cuando observamos a una persona adulta, pero durante las etapas embrionarias deben ser especificadas mediante señales celulares.
La aparición de la línea primitiva contribuye a establecer el eje craneocaudal.
La relación entre ectodermo, mesodermo y endodermo participa en la organización dorsoventral.
La lateralidad izquierda-derecha requiere mecanismos moleculares todavía más específicos.
Una vez definidos, estos ejes permitirán que cada órgano aparezca en una región apropiada.
¿Cómo sabe el embrión cuál es la izquierda y cuál es la derecha?
El establecimiento de la lateralidad constituye uno de los fenómenos más fascinantes de la embriología.
Aunque externamente el embrión temprano parece relativamente simétrico, los órganos internos del adulto no son completamente simétricos.
El corazón presenta una orientación determinada.
El hígado se localiza predominantemente a la derecha.
El bazo se encuentra a la izquierda.
El estómago adopta una posición asimétrica.
Para conseguir esta organización, el embrión debe generar señales diferentes en cada lado.
La región del nodo participa de forma importante en este proceso. La actividad ciliar y redes de señalización molecular contribuyen a establecer una expresión asimétrica de genes en el mesodermo lateral.
Entre los sistemas moleculares implicados se encuentran señales relacionadas con NODAL, LEFTY y el factor de transcripción PITX2.
PITX2 desempeña una función importante en especificar identidad izquierda en determinados tejidos.
Alteraciones de estas redes pueden generar defectos de lateralidad.
Cilios del nodo y lateralidad
Determinadas células del nodo poseen cilios cuya actividad contribuye a crear condiciones asimétricas entre ambos lados embrionarios.
La función adecuada de estos cilios forma parte del proceso que establece lateralidad.
Esto proporciona una conexión clínica particularmente interesante.
Algunas enfermedades relacionadas con alteraciones de proteínas ciliares pueden acompañarse de defectos de lateralidad visceral.
En determinados individuos puede aparecer situs inversus, donde la disposición de diversos órganos es aproximadamente una imagen especular de la organización habitual.
En otros casos pueden aparecer patrones heterotáxicos más complejos, donde la distribución visceral no corresponde ni a la anatomía habitual ni a una inversión completa.
De esta manera, una estructura microscópica extremadamente pequeña puede influir sobre la posición final de órganos completos.
Señalización molecular durante la gastrulación
La gastrulación depende de una red de señales extremadamente compleja.
Entre las vías relevantes se encuentran factores de las familias WNT, FGF, BMP y NODAL, además de múltiples factores de transcripción y moduladores extracelulares.
Estas señales regulan proliferación, migración, transición epitelio-mesénquima y especificación de destinos celulares.
Por ejemplo, la señalización relacionada con FGF participa en cambios de adhesión y migración de células epiblásticas durante su ingreso por la línea primitiva.
NODAL desempeña funciones importantes en especificación de mesodermo, endodermo y lateralidad.
BMP participa en patrones de diferenciación, aunque sus efectos dependen enormemente del contexto, concentración y presencia de inhibidores.
WNT también posee funciones críticas en establecimiento de la línea primitiva y organización embrionaria.
Lo esencial no es memorizar una lista aislada de moléculas, sino comprender que la gastrulación es el resultado de una red de información espacial.
Las células saben cómo comportarse porque reciben señales diferentes según su posición y momento del desarrollo.
Migración celular y destino embrionario
El destino de una célula durante gastrulación depende en parte del lugar por donde ingresa a través de la línea primitiva.
Las células que atraviesan regiones diferentes no necesariamente formarán los mismos componentes del mesodermo.
Las poblaciones que ingresan cerca del nodo contribuyen a estructuras axiales.
Otras poblaciones se distribuyen hacia regiones paraxiales, intermedias y laterales.
Esta relación entre posición de ingreso y destino final permite transformar la línea primitiva en una especie de mapa dinámico.
El embrión no solamente produce células mesodérmicas; las distribuye siguiendo un patrón.
Esta organización inicial será esencial cuando comiencen procesos como formación de somitas, desarrollo cardiovascular y diferenciación urogenital.
Organización del mesodermo intraembrionario
Después de su formación, el mesodermo comienza a diferenciarse espacialmente.
El mesodermo situado inmediatamente a ambos lados de la notocorda se convertirá en mesodermo paraxial.
Más lateralmente se encuentra el mesodermo intermedio.
Todavía más lateral aparece el mesodermo de la placa lateral.
Esta organización constituye el comienzo de una regionalización anatómica muy importante.
El mesodermo paraxial posteriormente formará somitas.
El mesodermo intermedio estará relacionado fundamentalmente con el aparato urogenital.
El mesodermo lateral se dividirá posteriormente en capas somática y esplácnica al aparecer el celoma intraembrionario.
Esta subdivisión muestra cómo el proceso de diferenciación se vuelve progresivamente más específico.
Primero existe epiblasto.
Después aparecen tres capas germinales.
Luego cada capa se subdivide.
Posteriormente esas regiones producen tejidos.
Finalmente, los tejidos se integran para formar órganos.
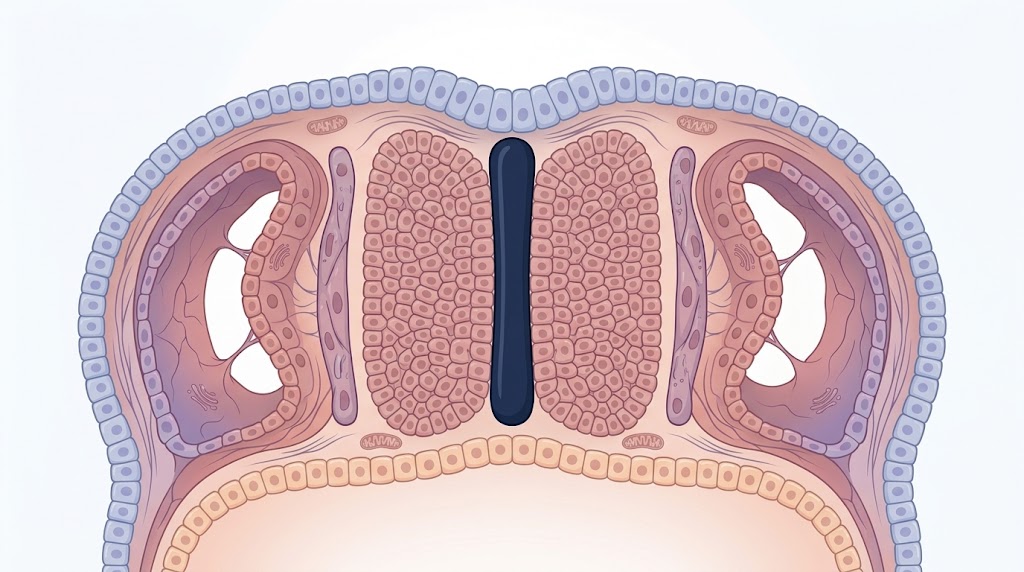
Mesodermo paraxial
El mesodermo paraxial se localiza a ambos lados de la notocorda y del tubo neural en desarrollo.
Posteriormente se segmentará en estructuras llamadas somitas.
Los somitas tendrán una enorme importancia en la organización segmentaria del cuerpo.
De ellos derivarán regiones asociadas con musculatura esquelética, vértebras y dermis.
La relación anatómica entre somitas, notocorda y tubo neural explica gran parte de la organización embrionaria del tronco.
Aunque la somitogénesis ocurre después de los eventos iniciales de gastrulación, no podría producirse correctamente sin la distribución mesodérmica establecida durante ella.
Mesodermo intermedio
El mesodermo intermedio se localiza entre el mesodermo paraxial y el lateral.
Su principal relevancia está relacionada con el desarrollo del aparato urogenital.
Riñones, gónadas y sistemas de conductos asociados mantienen relaciones embrionarias con este territorio.
Esto ayuda a entender por qué anomalías renales y genitales pueden coexistir en determinados síndromes congénitos: ambos sistemas comparten relaciones de desarrollo tempranas.
Mesodermo de la placa lateral
El mesodermo lateral se localiza en las regiones más periféricas del disco embrionario.
Posteriormente aparecerán espacios dentro de él que confluirán para formar el celoma intraembrionario.
Este proceso dividirá el mesodermo lateral en una hoja somática y una hoja esplácnica.
La capa somática se relacionará con ectodermo y participará en estructuras de la pared corporal.
La capa esplácnica se relacionará con endodermo y contribuirá a paredes de vísceras.
Esta organización será fundamental para comprender posteriormente la formación de cavidades corporales y membranas serosas.
Gastrulación y sistema cardiovascular
El sistema cardiovascular comienza a desarrollarse extremadamente temprano.
Esta precocidad tiene una razón fisiológica.
A medida que el embrión aumenta de tamaño, la difusión deja de ser suficiente para satisfacer las necesidades metabólicas de todos los tejidos.
Por ello, deben establecerse mecanismos de transporte.
Células mesodérmicas contribuirán a la formación del aparato cardiovascular.
En etapas próximas aparecen islotes sanguíneos, vasos primitivos y estructuras cardíacas.
La gastrulación proporciona entonces parte del material celular necesario para establecer el primer sistema funcional importante del embrión.
Regresión de la línea primitiva
La línea primitiva no permanece durante todo el desarrollo.
Después de cumplir su función comienza a involucionar.
Durante la cuarta semana experimenta una regresión progresiva y finalmente desaparece.
Esta desaparición es importante porque la persistencia anormal de células pluripotenciales de la línea primitiva puede relacionarse con determinadas patologías.
El ejemplo clásico es el teratoma sacrococcígeo.
Teratoma sacrococcígeo
El teratoma sacrococcígeo constituye una de las correlaciones clínicas más conocidas de la gastrulación.
Se considera relacionado con restos celulares pluripotenciales de la región de la línea primitiva.
Debido a su capacidad para diferenciarse en múltiples tipos celulares, estos tumores pueden contener tejidos derivados de varias capas germinales.
Pueden encontrarse combinaciones de tejidos como cartílago, epitelio, tejido nervioso u otros componentes.
La región sacrococcígea corresponde precisamente al territorio donde persistió la parte caudal de la línea primitiva.
Esta asociación demuestra cómo una estructura embrionaria transitoria puede convertirse en el origen de una patología clínicamente relevante si no desaparece adecuadamente.
Disgenesia caudal
Alteraciones del desarrollo del mesodermo caudal pueden producir un espectro de anomalías denominado disgenesia caudal o síndrome de regresión caudal.
Las manifestaciones pueden afectar vértebras inferiores, médula espinal, pelvis, extremidades inferiores y sistemas urogenital y gastrointestinal.
La gravedad es variable.
Esta condición muestra la importancia del mesodermo generado durante la gastrulación para la formación de estructuras caudales.
Existe una asociación epidemiológica conocida con diabetes materna pregestacional, aunque la etiología es multifactorial y no debe reducirse a un único mecanismo.
El ejemplo permite comprender cómo una alteración extremadamente temprana puede terminar comprometiendo múltiples sistemas anatómicos simultáneamente.
Alteraciones de lateralidad
Los defectos en el establecimiento del eje izquierda-derecha pueden producir diferentes patrones anatómicos.
En situs inversus totalis existe una disposición aproximadamente especular de muchas vísceras.
En heterotaxia existe una organización más irregular y compleja.
Estas alteraciones pueden acompañarse de cardiopatías congénitas importantes debido a que el desarrollo del corazón depende profundamente de señales de lateralidad.
Por ello, los mecanismos moleculares establecidos durante gastrulación poseen consecuencias clínicas que pueden persistir toda la vida.
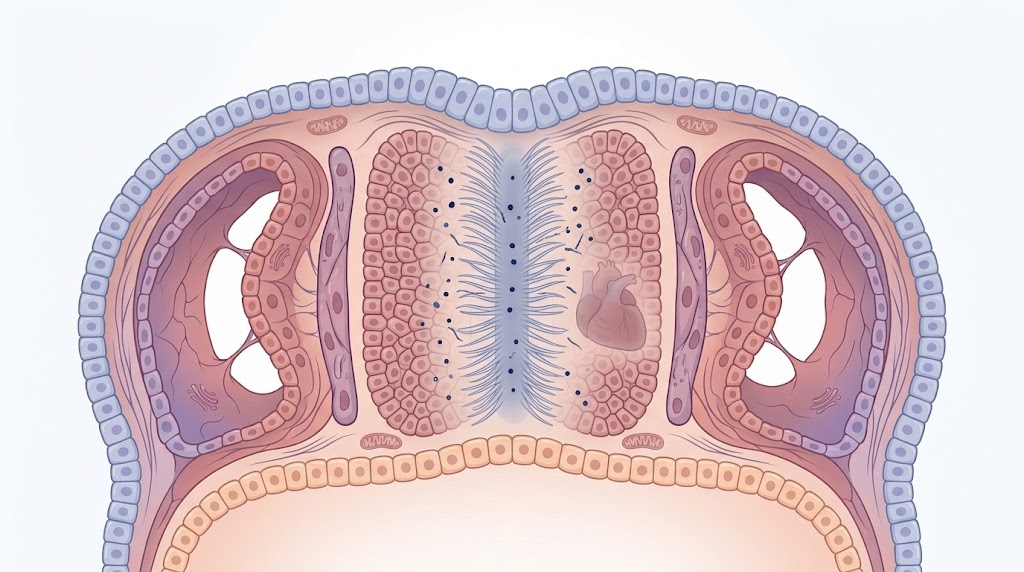
Gastrulación y cardiopatías congénitas
La formación cardíaca ocurre después de que las células mesodérmicas correspondientes han sido especificadas y posicionadas.
Alteraciones tempranas de señalización y lateralidad pueden modificar el desarrollo cardíaco.
Esto no significa que todas las cardiopatías congénitas sean defectos directos de gastrulación, pero sí que el establecimiento temprano de ejes y poblaciones mesodérmicas crea las condiciones necesarias para el desarrollo cardiovascular normal.
La embriología cardíaca no puede entenderse completamente sin comprender primero gastrulación y lateralidad.
Gastrulación y desarrollo craneofacial
La región craneal del embrión depende de interacciones extremadamente complejas entre mesodermo precordal, ectodermo, neuroectodermo y posteriormente cresta neural.
Las señales de la línea media participan en la organización del prosencéfalo y del territorio facial.
Cuando estas señales se alteran de manera grave pueden aparecer defectos de la línea media.
La holoprosencefalia constituye un ejemplo relevante de alteración en la separación y organización del prosencéfalo, que puede acompañarse de anomalías craneofaciales.
Aunque su etiología es heterogénea y puede involucrar factores genéticos y ambientales diferentes, el estudio de las señales axiales embrionarias ayuda a comprender por qué cerebro y cara pueden afectarse simultáneamente.
Gastrulación y teratógenos
La sensibilidad del embrión a diferentes agresiones depende enormemente del momento del desarrollo.
Durante la gastrulación se están especificando capas germinales, ejes corporales y poblaciones celulares esenciales.
Una alteración grave en esta etapa puede producir consecuencias extensas porque todavía no se han formado órganos aislados; se están estableciendo poblaciones precursoras completas.
Por ello, el principio fundamental de teratología establece que el efecto de una exposición depende tanto de la naturaleza del agente como de la dosis, susceptibilidad genética y momento del desarrollo.
La misma exposición puede producir consecuencias distintas según la etapa embrionaria en la que ocurra.
¿Por qué la tercera semana es tan importante?
La tercera semana representa uno de los periodos más transformadores del desarrollo humano.
En pocos días el embrión pasa de un disco bilaminar relativamente sencillo a una estructura trilaminar con ejes definidos, notocorda, territorios mesodérmicos y preparación para neurulación y organogénesis.
A partir de esta semana comienzan también procesos relacionados con formación vascular, sistema nervioso y organización segmentaria.
En términos conceptuales, durante esta etapa comienza a aparecer el plano anatómico básico del individuo.
Por eso numerosos defectos originados en este periodo poseen repercusiones amplias.
Gastrulación y neurulación
Gastrulación y neurulación deben entenderse como procesos estrechamente conectados.
La formación de la notocorda durante gastrulación modifica el destino del ectodermo suprayacente mediante señales moleculares.
Este ectodermo se engrosa y forma la placa neural.
Posteriormente, la placa neural se plegará y generará el tubo neural.
Por tanto, el sistema nervioso central no comienza a desarrollarse de manera aislada. Su inducción depende de estructuras que aparecieron durante gastrulación.
Esta secuencia es un ejemplo perfecto de inducción embrionaria.
Una población celular modifica el destino de otra mediante señales.
La organización anatómica emerge entonces de una cadena de interacciones entre tejidos.
La notocorda como centro de señalización
La notocorda no solamente induce tejido neural.
También influye en la organización del tubo neural y de estructuras mesodérmicas vecinas.
Entre las señales relevantes se encuentra Sonic Hedgehog, que desempeñará funciones importantes en patrones ventrales del sistema nervioso y desarrollo axial.
Este tipo de señalización demuestra que una estructura puede tener un impacto desproporcionadamente grande respecto a su tamaño.
La notocorda es pequeña y transitoria, pero organiza regiones completas del embrión.
La gastrulación como proceso tridimensional
Los esquemas tradicionales suelen representar la gastrulación como tres capas planas superpuestas.
Esta representación es útil para comenzar, pero puede producir una falsa impresión.
En realidad, las células se mueven en tres dimensiones.
Convergen hacia la línea primitiva.
Se invaginan.
Migran lateralmente.
Se desplazan cranealmente.
Cambian adhesión.
Modifican forma.
Responden a señales.
Interactúan con matriz extracelular.
El resultado es una estructura espacial dinámica.
Comprender esta tridimensionalidad permite posteriormente interpretar mejor el plegamiento embrionario y la formación de órganos.
El significado biológico de las capas germinales
Las capas germinales no deben considerarse simplemente tres colores en un diagrama.
Representan poblaciones celulares que han adquirido identidades diferentes.
Cada una expresa combinaciones específicas de genes y responde de manera distinta a señales posteriores.
A partir de ellas se producirán nuevas subdivisiones y poblaciones especializadas.
El ectodermo generará ectodermo superficial, neuroectodermo y cresta neural.
El mesodermo se organizará en territorios axiales, paraxiales, intermedios y laterales.
El endodermo se integrará en el tubo intestinal y dará origen a epitelios y estructuras glandulares.
Así, la gastrulación representa el primer gran nivel de especialización del cuerpo embrionario.
Gastrulación y organogénesis
La organogénesis depende de que las células correctas estén localizadas en los sitios adecuados.
Un órgano raramente deriva de una sola capa germinal.
Los órganos suelen construirse mediante interacciones entre tejidos de diferentes orígenes.
Por ejemplo, un epitelio puede derivar de endodermo mientras su músculo y tejido conectivo proceden del mesodermo.
Esta cooperación requiere que las capas hayan sido establecidas y posicionadas correctamente.
Por ello, la gastrulación es una condición indispensable para la organogénesis.
Primero se establece el mapa.
Después se construyen los órganos.
Importancia clínica de comprender la gastrulación
La gastrulación proporciona un marco conceptual para interpretar numerosas anomalías congénitas.
Cuando un defecto compromete estructuras derivadas de distintos órganos pero relacionadas con una misma región embrionaria, puede existir un problema ocurrido mucho antes de la formación definitiva de esos órganos.
La embriología permite entonces reconstruir retrospectivamente el momento probable de la alteración.
Un defecto en estructuras caudales puede orientar hacia problemas de mesodermo caudal.
Una anomalía de lateralidad puede relacionarse con mecanismos del nodo.
Una masa sacrococcígea con múltiples tejidos puede recordar persistencia de células pluripotenciales.
Una alteración de la línea media craneal puede llevar a considerar defectos de señalización axial.
De esta manera, la embriología deja de ser una colección de secuencias temporales y se convierte en una herramienta para comprender malformaciones.
Del disco bilaminar al organismo tridimensional
Quizá la mejor manera de comprender la importancia de la gastrulación sea comparar el embrión antes y después del proceso.
Antes existe una estructura relativamente plana formada principalmente por dos capas celulares.
Después existen tres capas germinales, una línea media axial, una organización craneocaudal definida, señales de lateralidad y poblaciones celulares localizadas en regiones específicas.
Poco después comenzarán neurulación, formación de somitas, plegamiento corporal, desarrollo cardiovascular y organogénesis.
La gastrulación constituye, por tanto, el acontecimiento que convierte una estructura embrionaria temprana en el fundamento de un organismo organizado tridimensionalmente.
Conclusión
La gastrulación es uno de los procesos centrales del desarrollo embrionario humano porque establece la arquitectura básica sobre la cual se construirá todo el organismo.
Durante la tercera semana, las células del epiblasto convergen hacia la línea primitiva, modifican sus mecanismos de adhesión, atraviesan una transición epitelio-mesénquima y migran hacia posiciones específicas.
Las primeras células que ingresan reemplazan al hipoblasto y forman endodermo definitivo. Posteriormente otras células se sitúan entre las capas superficiales y profundas para constituir mesodermo intraembrionario. Las células que permanecen en la superficie del epiblasto forman ectodermo.
Con ello aparece el disco embrionario trilaminar.
Sin embargo, la importancia de la gastrulación va mucho más allá de la aparición de tres capas.
Durante este periodo se establece la organización craneocaudal, dorsoventral y derecha-izquierda. Se forma la notocorda, se organizan territorios mesodérmicos y se generan centros de señalización que dirigirán acontecimientos posteriores.
La notocorda inducirá neuroectodermo y contribuirá a organizar tejidos vecinos.
El mesodermo se regionalizará y permitirá formación de sistema musculoesquelético, cardiovascular y urogenital.
El endodermo participará en la formación de numerosos epitelios internos.
El ectodermo dará origen a piel y sistema nervioso, entre múltiples derivados.
Alteraciones de estos procesos pueden producir consecuencias clínicas importantes, incluyendo defectos de lateralidad, disgenesia caudal, teratomas sacrococcígeos y alteraciones del desarrollo axial.
Por ello, la gastrulación no debería memorizarse simplemente como “ectodermo, mesodermo y endodermo”.
La pregunta realmente importante es cómo una población relativamente uniforme de células epiblásticas consigue transformarse en un organismo organizado.
La respuesta se encuentra en migración celular, señalización molecular, cambios de adhesión, interacción tisular y establecimiento progresivo de identidad espacial.
Comprender gastrulación significa comprender el momento en el que el embrión humano comienza a adquirir un verdadero plan corporal.
Y a partir de ese plan comenzará prácticamente toda la anatomía que estudiaremos después.
Aprende los pasos de la gastrulación en E-Vantis y lleva tu razonamiento clínico al siguiente nivel.