Introducción
El ciclo de Krebs constituye uno de los procesos centrales del metabolismo humano. También conocido como ciclo del ácido cítrico o ciclo de los ácidos tricarboxílicos, funciona como una auténtica intersección metabólica en la que convergen los productos derivados del metabolismo de carbohidratos, lípidos y aminoácidos. Su importancia, por tanto, va mucho más allá de memorizar una secuencia de ocho reacciones químicas o recordar los nombres de sus intermediarios.
Para comprender realmente el ciclo de Krebs es necesario abandonar la idea de que su objetivo principal consiste simplemente en producir ATP. De hecho, la generación directa de energía en cada vuelta del ciclo es relativamente pequeña. Su verdadera importancia energética radica en capturar la energía contenida en el acetil-CoA y transferirla principalmente hacia moléculas reducidas de NADH y FADH₂. Estos transportadores entregarán posteriormente sus electrones a la cadena respiratoria mitocondrial, donde se producirá la mayor parte del ATP asociado con la oxidación aerobia de los nutrientes.
El ciclo también constituye un extraordinario punto de integración metabólica. El piruvato generado por la glucólisis puede convertirse en acetil-CoA e ingresar al ciclo. Los ácidos grasos producen acetil-CoA mediante β-oxidación. Numerosos aminoácidos pueden transformarse en acetil-CoA o incorporarse directamente a diferentes intermediarios del ciclo. Al mismo tiempo, moléculas como oxaloacetato, α-cetoglutarato y succinil-CoA pueden abandonar temporalmente la vía y utilizarse para sintetizar glucosa, aminoácidos, porfirinas y otras moléculas esenciales.
Esta doble función, simultáneamente catabólica y anabólica, convierte al ciclo de Krebs en una vía anfibólica. El organismo no lo utiliza únicamente para degradar nutrientes, sino también como una plataforma molecular desde la cual redistribuye carbono y energía de acuerdo con las necesidades celulares.
Comprender el ciclo de Krebs significa, en última instancia, comprender cómo la célula integra disponibilidad de nutrientes, demanda energética, estado redox y biosíntesis. Esta perspectiva permite relacionar la bioquímica con situaciones clínicas tan diversas como hipoxia, deficiencias vitamínicas, alteraciones mitocondriales, intoxicaciones, ejercicio, ayuno, diabetes y cáncer.
¿Qué es el ciclo de Krebs?
El ciclo de Krebs es una secuencia cíclica de reacciones enzimáticas mediante la cual el grupo acetilo de dos carbonos aportado por el acetil-CoA es oxidado progresivamente hasta dióxido de carbono. Durante esta oxidación, los electrones de alta energía son transferidos principalmente hacia NAD⁺ y FAD, formando NADH y FADH₂.
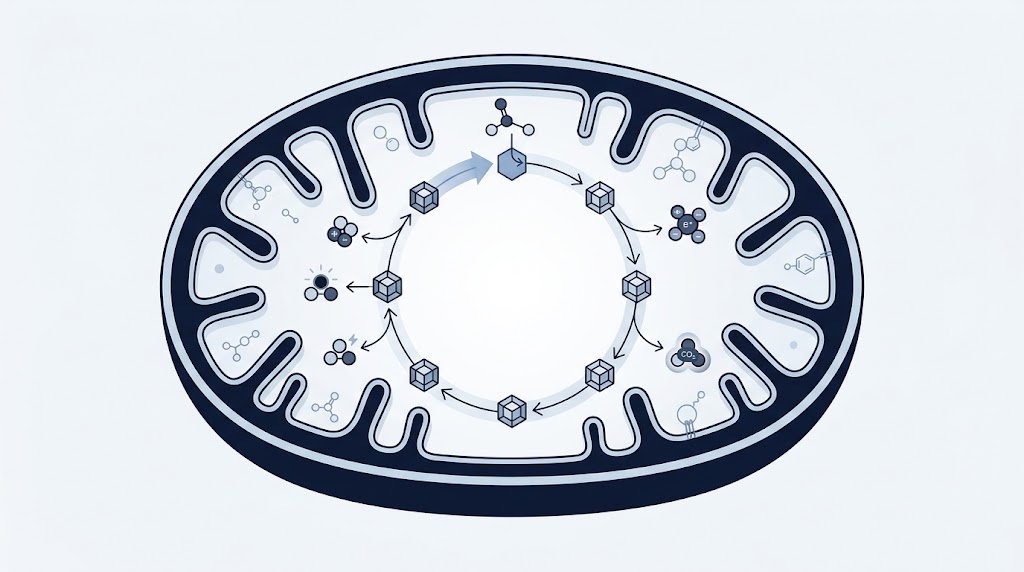
En células eucariotas, prácticamente todas las reacciones del ciclo ocurren en la matriz mitocondrial. Existe, sin embargo, una excepción particularmente importante: la succinato deshidrogenasa está localizada en la membrana mitocondrial interna. Esta peculiaridad no es casual. La enzima participa simultáneamente en el ciclo de Krebs y en la cadena respiratoria, donde constituye el complejo II.
La naturaleza cíclica de la vía deriva de que la molécula aceptora inicial, el oxaloacetato, se regenera al finalizar cada vuelta. El oxaloacetato posee cuatro carbonos y se condensa con el grupo acetilo de dos carbonos aportado por el acetil-CoA para formar una molécula de seis carbonos, el citrato. A través de una serie de transformaciones, descarboxilaciones y oxidaciones, el citrato termina regenerando nuevamente oxaloacetato.
Por ello, el oxaloacetato funciona de manera similar a un catalizador metabólico: participa en la reacción inicial, experimenta numerosas transformaciones y finalmente reaparece. En condiciones ideales no se consume de manera neta durante una vuelta completa.
Sin embargo, la fisiología celular es considerablemente más compleja. Los intermediarios del ciclo pueden abandonar la vía para participar en procesos biosintéticos, por lo que deben existir mecanismos capaces de reponerlos. Esta necesidad dará origen al concepto de reacciones anapleróticas, fundamental para comprender el funcionamiento real del ciclo en el organismo.
¿Dónde ocurre el ciclo de Krebs?
La compartimentalización mitocondrial es indispensable para comprender el metabolismo energético. La mitocondria no funciona simplemente como un recipiente que contiene enzimas, sino como una estructura organizada donde diferentes vías metabólicas están físicamente conectadas.
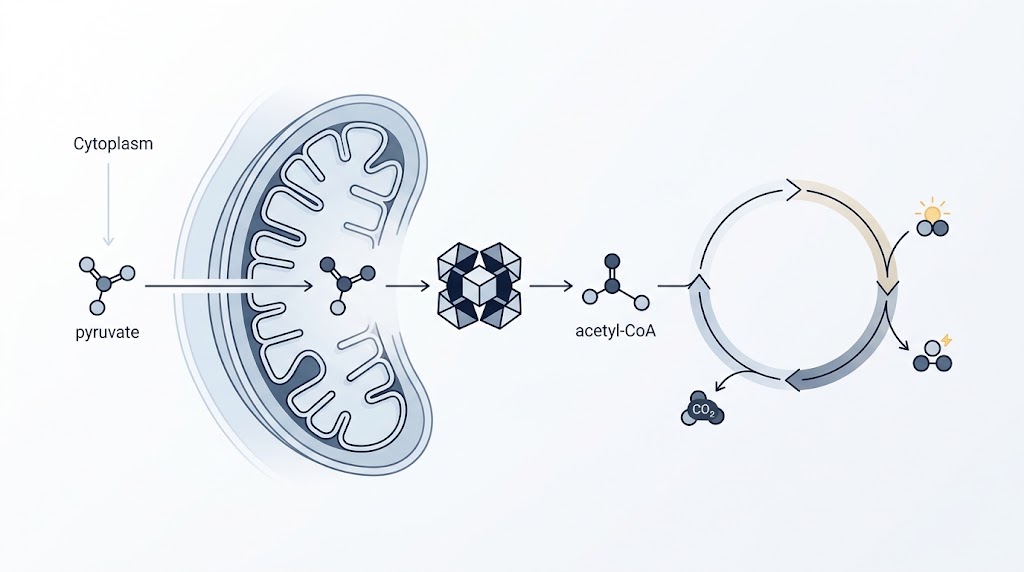
La glucólisis ocurre en el citosol y produce piruvato. Para que el carbono procedente de la glucosa pueda continuar hacia la oxidación aerobia, el piruvato debe ingresar a la mitocondria mediante transportadores específicos. Una vez en la matriz mitocondrial, puede convertirse en acetil-CoA mediante el complejo piruvato deshidrogenasa.
El acetil-CoA resultante queda entonces disponible para incorporarse al ciclo de Krebs.
La matriz mitocondrial contiene prácticamente todas las enzimas necesarias para desarrollar el ciclo. Esta localización permite que el NADH producido quede metabólicamente próximo a la cadena de transporte de electrones localizada en la membrana mitocondrial interna.
Esta relación espacial resulta crucial. El ciclo extrae electrones de los combustibles metabólicos y la cadena respiratoria utiliza posteriormente esos electrones para generar un gradiente electroquímico de protones. Finalmente, la ATP sintasa aprovecha ese gradiente para sintetizar ATP.
Por tanto, ciclo de Krebs, cadena respiratoria y fosforilación oxidativa no deberían estudiarse como procesos independientes. Constituyen componentes sucesivos de un mismo sistema energético mitocondrial.
Del piruvato al acetil-CoA: la reacción que conecta glucólisis y ciclo de Krebs
Antes de ingresar al ciclo existe una reacción fundamental que frecuentemente se estudia junto con él: la descarboxilación oxidativa del piruvato.
El piruvato contiene tres carbonos. El acetil-CoA que ingresará al ciclo contiene únicamente dos. Durante su transformación se elimina uno de los carbonos en forma de dióxido de carbono y simultáneamente ocurre una oxidación que permite reducir NAD⁺ a NADH.
Esta reacción está catalizada por el complejo piruvato deshidrogenasa, una enorme estructura multienzimática localizada en la matriz mitocondrial. Su función representa un punto metabólico crítico porque conecta directamente la glucólisis con la oxidación mitocondrial.
La reacción es esencialmente irreversible en condiciones fisiológicas. Esto tiene consecuencias metabólicas profundas. Una vez que el carbono del piruvato se convierte en acetil-CoA, no puede simplemente recorrer la misma vía en sentido inverso para volver a generar piruvato.
El complejo piruvato deshidrogenasa requiere varios cofactores derivados de vitaminas, entre ellos tiamina, riboflavina, niacina y ácido pantoténico, además del ácido lipoico. Esta dependencia permite comprender por qué determinadas deficiencias nutricionales pueden alterar profundamente el metabolismo energético.
La tiamina resulta especialmente importante. Su forma activa, el pirofosfato de tiamina, participa en la descarboxilación del piruvato. Cuando existe deficiencia grave de vitamina B1, la capacidad de oxidar adecuadamente piruvato disminuye, afectando especialmente tejidos con alta demanda energética como el sistema nervioso.
La actividad de piruvato deshidrogenasa también está cuidadosamente regulada. Cuando la célula posee abundante ATP, NADH y acetil-CoA, existen señales de que la demanda energética está cubierta y el complejo reduce su actividad. Cuando predominan señales de baja energía, la oxidación de piruvato puede aumentar.
De esta manera, incluso antes de comenzar el ciclo, la entrada de carbono al metabolismo oxidativo ya está sometida a control.
El acetil-CoA: punto de convergencia metabólica
El acetil-CoA ocupa una posición extraordinariamente importante dentro del metabolismo. No procede exclusivamente de la glucosa. Puede generarse mediante diferentes rutas y, por ello, representa uno de los principales puntos de convergencia entre carbohidratos, lípidos y proteínas.
Después de una comida rica en carbohidratos, la glucosa puede recorrer la glucólisis, producir piruvato y posteriormente acetil-CoA. Durante el ayuno, en cambio, los ácidos grasos movilizados desde el tejido adiposo sufren β-oxidación mitocondrial y generan grandes cantidades de acetil-CoA.
Algunos aminoácidos también pueden convertirse directa o indirectamente en acetil-CoA.
Esto significa que el ciclo de Krebs no es simplemente “el siguiente paso de la glucólisis”. Es una vía central que recibe unidades de carbono procedentes de diferentes combustibles metabólicos.
El destino del acetil-CoA dependerá del estado metabólico del organismo. Puede oxidarse en el ciclo de Krebs, utilizarse para sintetizar ácidos grasos y colesterol o, en determinadas condiciones hepáticas, desviarse hacia la producción de cuerpos cetónicos.
Esta capacidad de redistribución convierte al acetil-CoA en una señal metabólica además de un simple sustrato.
Primera reacción: formación de citrato
El ciclo comienza cuando el acetil-CoA de dos carbonos se combina con oxaloacetato de cuatro carbonos. La reacción está catalizada por citrato sintasa y produce citrato, una molécula de seis carbonos.
Esta reacción posee una variación de energía libre considerablemente negativa y constituye uno de los principales puntos de regulación del ciclo.
La energía almacenada en el enlace tioéster del acetil-CoA contribuye a impulsar la reacción. Esto permite comprender por qué la coenzima A no funciona simplemente como un transportador pasivo. El enlace que mantiene unido al grupo acetilo posee un elevado potencial de transferencia.
El citrato resultante no es únicamente un intermediario del ciclo. También funciona como señal del estado energético celular.
Cuando existe abundancia energética, el citrato puede acumularse y abandonar la mitocondria. En el citosol puede contribuir a la síntesis de ácidos grasos y colesterol. Además, concentraciones elevadas de citrato inhiben determinadas enzimas glucolíticas, ayudando a disminuir la utilización de glucosa cuando la célula dispone de suficiente energía.
De esta manera, incluso el primer producto del ciclo participa en la coordinación global del metabolismo.
Segunda reacción: citrato a isocitrato
El citrato debe reorganizarse antes de poder ser oxidado eficientemente. Esta transformación ocurre mediante la enzima aconitasa.
La aconitasa convierte citrato en isocitrato mediante una reacción que incluye deshidratación y posterior rehidratación. Aunque inicialmente puede parecer una transformación poco importante, esta reorganización modifica la posición del grupo hidroxilo de la molécula y prepara al intermediario para la siguiente reacción oxidativa.
La aconitasa contiene un centro hierro-azufre indispensable para su función. Esto ilustra una característica recurrente del metabolismo: numerosas enzimas dependen de metales y grupos prostéticos especializados para realizar reacciones químicas que serían extremadamente difíciles en condiciones fisiológicas normales.
Tercera reacción: isocitrato a α-cetoglutarato
La conversión de isocitrato en α-cetoglutarato constituye la primera descarboxilación oxidativa del ciclo.
La enzima isocitrato deshidrogenasa oxida el isocitrato y transfiere electrones hacia NAD⁺, formando NADH. Simultáneamente se libera una molécula de dióxido de carbono.
La molécula pasa entonces de seis a cinco carbonos.
Esta reacción representa uno de los principales puntos reguladores del ciclo. Cuando la célula posee niveles elevados de ATP y NADH, la actividad de isocitrato deshidrogenasa disminuye. En contraste, señales asociadas con mayor demanda energética favorecen su actividad.
En determinados tejidos, el calcio también puede estimular enzimas del metabolismo oxidativo. Esta relación resulta particularmente lógica en músculo. Cuando aumenta la concentración intracelular de calcio para producir contracción, también aumenta la necesidad de ATP. El metabolismo mitocondrial puede responder simultáneamente incrementando su capacidad oxidativa.
Esta coordinación permite que producción y consumo energético se ajusten dinámicamente.
Cuarta reacción: α-cetoglutarato a succinil-CoA
El α-cetoglutarato contiene cinco carbonos y sufre una segunda descarboxilación oxidativa para convertirse en succinil-CoA, de cuatro carbonos.
La reacción está catalizada por el complejo α-cetoglutarato deshidrogenasa.
Existe una notable similitud entre este complejo y la piruvato deshidrogenasa. Ambos realizan descarboxilaciones oxidativas, producen NADH y utilizan cofactores semejantes.
Durante la reacción se libera otra molécula de dióxido de carbono y se forma NADH.
La formación de succinil-CoA también conserva parte de la energía de oxidación en un enlace tioéster de alta energía.
El α-cetoglutarato posee además enorme relevancia en el metabolismo de aminoácidos. Está estrechamente relacionado con glutamato mediante reacciones de transaminación y desaminación, estableciendo una conexión directa entre el ciclo de Krebs y el metabolismo nitrogenado.
Quinta reacción: succinil-CoA a succinato
La conversión de succinil-CoA en succinato es particularmente interesante porque produce directamente un nucleótido trifosfato mediante fosforilación a nivel de sustrato.
La energía contenida en el enlace tioéster del succinil-CoA se utiliza para formar GTP, que puede intercambiar fácilmente su fosfato con ADP para generar ATP.
Esta es la única reacción del ciclo donde aparece directamente un equivalente de ATP.
Esto ayuda a corregir una idea frecuente: el ciclo de Krebs no produce grandes cantidades de ATP de manera directa. La mayor parte de su rendimiento energético se conserva en NADH y FADH₂.
El succinil-CoA también posee importancia biosintética. Participa, entre otras funciones, en la síntesis de porfirinas, esenciales para producir grupos hemo.
Por ello, nuevamente encontramos un intermediario que conecta metabolismo energético con biosíntesis celular.
Sexta reacción: succinato a fumarato
El succinato es oxidado a fumarato mediante succinato deshidrogenasa.
Esta reacción es excepcional dentro del ciclo porque la succinato deshidrogenasa se encuentra integrada en la membrana mitocondrial interna y constituye simultáneamente el complejo II de la cadena respiratoria.
Durante la oxidación del succinato, FAD acepta electrones y se reduce funcionalmente a FADH₂. Los electrones pasan posteriormente hacia la ubiquinona de la cadena respiratoria.
Esta conexión física entre ambas vías demuestra que el ciclo de Krebs y la cadena de transporte de electrones forman parte de una maquinaria metabólica estrechamente integrada.
Además, determinadas alteraciones de la succinato deshidrogenasa tienen relevancia médica. Mutaciones en componentes del complejo pueden alterar el metabolismo celular y se han relacionado con determinados tumores, demostrando que los intermediarios metabólicos también pueden influir en señalización celular y regulación génica.
Séptima reacción: fumarato a malato
El fumarato se hidrata mediante fumarasa para producir L-malato.
Aunque esta reacción no genera directamente NADH, FADH₂ ni ATP, es indispensable para preparar la molécula para la última oxidación del ciclo.
La fumarasa también posee relevancia clínica. Alteraciones hereditarias de esta enzima pueden modificar profundamente el metabolismo celular. La acumulación de fumarato puede influir sobre mecanismos de señalización relacionados con respuestas a hipoxia y regulación epigenética.
Estos hallazgos han transformado la visión clásica del ciclo. Sus intermediarios no deben entenderse únicamente como moléculas que “pasan” de una reacción a otra; algunos funcionan como verdaderas señales metabólicas capaces de modificar el comportamiento celular.
Octava reacción: malato a oxaloacetato
La última reacción está catalizada por malato deshidrogenasa. El malato es oxidado a oxaloacetato mientras NAD⁺ acepta electrones y se convierte en NADH.
Con ello se regenera la molécula de oxaloacetato necesaria para comenzar una nueva vuelta.
Desde el punto de vista termodinámico, esta reacción aislada no resulta especialmente favorable. Sin embargo, el oxaloacetato producido es rápidamente consumido por citrato sintasa en la siguiente vuelta, desplazando el equilibrio hacia adelante.
Este fenómeno constituye un excelente ejemplo de cómo deben interpretarse las rutas metabólicas. Las reacciones celulares no ocurren de forma aislada. Una reacción termodinámicamente desfavorable puede avanzar cuando su producto es consumido inmediatamente por otra reacción altamente favorable.
Una vez regenerado el oxaloacetato, el ciclo está preparado para aceptar otro acetil-CoA.
¿Qué produce realmente una vuelta del ciclo de Krebs?
Por cada molécula de acetil-CoA que completa una vuelta del ciclo se generan tres NADH, un FADH₂, un GTP y dos moléculas de dióxido de carbono.
Sin embargo, interpretar estos productos únicamente como una lista impide comprender su verdadero significado.
El GTP representa una pequeña cantidad de energía obtenida directamente. En contraste, NADH y FADH₂ contienen electrones de alta energía que posteriormente serán utilizados por la cadena respiratoria.
El NADH entrega electrones al complejo I, mientras que los electrones relacionados con la reacción de succinato deshidrogenasa ingresan a nivel del complejo II. Esta diferencia explica por qué NADH posee mayor rendimiento energético aproximado que FADH₂.
Utilizando las estimaciones modernas de relación P/O, la oxidación de tres NADH puede contribuir aproximadamente con 7.5 ATP, mientras que el FADH₂ aporta alrededor de 1.5 ATP. Si se agrega el equivalente energético del GTP, una vuelta del ciclo proporciona aproximadamente 10 ATP equivalentes por cada acetil-CoA oxidado.
Debido a que una molécula de glucosa produce dos moléculas de acetil-CoA, el ciclo gira dos veces por cada glucosa completamente oxidada.
Sin embargo, para calcular el rendimiento energético total de una molécula de glucosa deben considerarse también la glucólisis, la conversión del piruvato en acetil-CoA y la posterior fosforilación oxidativa.
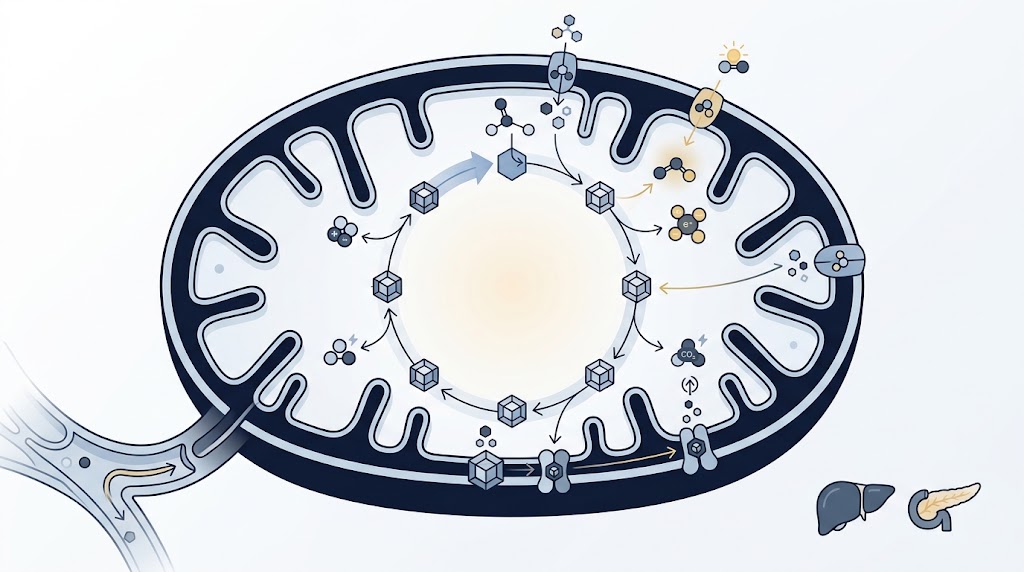
¿El ciclo de Krebs utiliza oxígeno?
Esta pregunta permite comprender una de las características más interesantes del metabolismo aeróbico.
Ninguna de las reacciones principales del ciclo utiliza directamente oxígeno molecular como sustrato. Sin embargo, el ciclo depende funcionalmente de la disponibilidad de oxígeno.
La razón se encuentra en NADH y FADH₂.
Para que el ciclo continúe, estas moléculas reducidas deben volver a oxidarse a NAD⁺ y FAD. Esta regeneración ocurre mediante la cadena de transporte de electrones, donde el oxígeno funciona finalmente como aceptor terminal de electrones.
Cuando existe hipoxia grave, la cadena respiratoria pierde capacidad para transferir electrones al oxígeno. Como consecuencia, NADH comienza a acumularse y disminuye la disponibilidad de NAD⁺.
Sin suficiente NAD⁺, varias reacciones oxidativas del ciclo disminuyen su velocidad.
Por ello, el ciclo de Krebs se considera funcionalmente aeróbico aunque no consuma directamente oxígeno.
Esta relación es fundamental para comprender el metabolismo durante hipoxia e isquemia.
Hipoxia, lactato y metabolismo mitocondrial
Cuando la disponibilidad de oxígeno es insuficiente para sostener adecuadamente la fosforilación oxidativa, las células necesitan mantener la glucólisis como fuente alternativa de ATP.
El problema es que la glucólisis requiere NAD⁺. Para regenerarlo en condiciones de limitada oxidación mitocondrial, el piruvato puede reducirse a lactato mediante lactato deshidrogenasa.
Esta reacción convierte NADH nuevamente en NAD⁺ y permite que la glucólisis continúe.
Por ello, la producción de lactato no debe interpretarse simplemente como un “desecho” metabólico. Constituye una estrategia para mantener equilibrio redox y producción glucolítica de ATP cuando la capacidad oxidativa mitocondrial resulta insuficiente o cuando el flujo glucolítico supera determinadas capacidades oxidativas.
Esta conexión entre ciclo de Krebs, cadena respiratoria y metabolismo del lactato posee enorme importancia en situaciones clínicas como choque, sepsis, ejercicio intenso e hipoperfusión tisular.
Regulación del ciclo de Krebs
El ciclo no funciona a una velocidad constante. Su actividad se adapta continuamente a las necesidades energéticas celulares.
Cuando existe abundancia de ATP, la necesidad de oxidar combustibles disminuye. De manera paralela, niveles elevados de NADH indican un estado altamente reducido y suficiente disponibilidad de equivalentes energéticos.
Estas señales inhiben diversos puntos del metabolismo oxidativo.
Entre las enzimas particularmente relevantes para la regulación se encuentran citrato sintasa, isocitrato deshidrogenasa y α-cetoglutarato deshidrogenasa. El complejo piruvato deshidrogenasa, aunque técnicamente precede al ciclo, también controla de manera importante la entrada de carbono procedente de carbohidratos.
Cuando aumenta ADP, la célula interpreta que se está consumiendo ATP y que existe necesidad energética. Esto favorece la actividad oxidativa.
Por tanto, el flujo del ciclo responde fundamentalmente a una pregunta celular: ¿cuánta energía se necesita en este momento?
Esta regulación explica por qué una célula muscular durante ejercicio puede aumentar dramáticamente su metabolismo oxidativo, mientras que la misma célula en reposo mantiene un flujo considerablemente menor.
El ciclo de Krebs como vía anfibólica
Una de las características más importantes del ciclo es su naturaleza anfibólica.
Una vía catabólica degrada moléculas para obtener energía. Una vía anabólica utiliza moléculas pequeñas para construir estructuras más complejas. El ciclo de Krebs participa en ambos procesos.
Desde el punto de vista catabólico, recibe acetil-CoA derivado de carbohidratos, lípidos y determinados aminoácidos y permite oxidar sus carbonos.
Desde el punto de vista anabólico, sus intermediarios pueden utilizarse como precursores de numerosas moléculas.
El citrato puede contribuir a la síntesis citosólica de ácidos grasos y colesterol. El α-cetoglutarato puede relacionarse con glutamato y otros aminoácidos. El succinil-CoA participa en síntesis de porfirinas y hemo. El oxaloacetato puede convertirse en aspartato o participar indirectamente en gluconeogénesis.
Esta salida continua de intermediarios plantea un problema: si demasiadas moléculas abandonaran el ciclo, eventualmente disminuiría la cantidad disponible para mantenerlo funcionando.
Para evitarlo existen las reacciones anapleróticas.
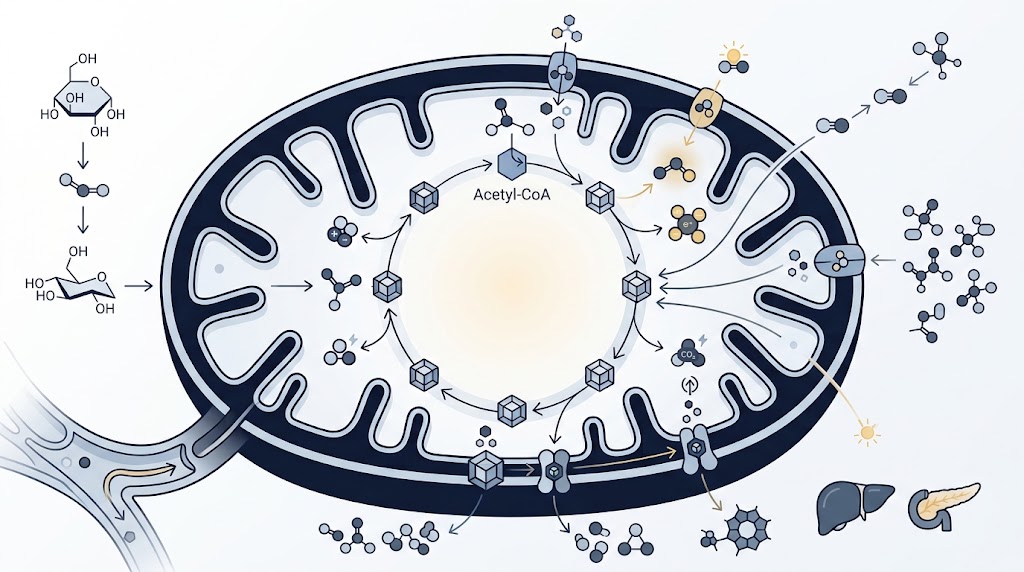
Reacciones anapleróticas: cómo se repone el ciclo
Las reacciones anapleróticas son aquellas capaces de reponer intermediarios del ciclo de Krebs.
Una de las más importantes en humanos es la conversión de piruvato en oxaloacetato mediante piruvato carboxilasa.
Esta enzima mitocondrial utiliza ATP y requiere biotina como cofactor. Además, es activada por acetil-CoA.
La lógica metabólica resulta extraordinariamente elegante. Si existe mucho acetil-CoA pero poco oxaloacetato, el acetil-CoA no puede ingresar eficientemente al ciclo. Al activar piruvato carboxilasa, el exceso de acetil-CoA favorece la producción de oxaloacetato, proporcionando la molécula necesaria para condensarse con él.
Diferentes aminoácidos también pueden generar intermediarios del ciclo. Esta capacidad permite integrar el metabolismo proteico con el metabolismo energético.
Por ello, la concentración de intermediarios del ciclo es dinámica y depende del equilibrio entre las moléculas que entran, las que salen para biosíntesis y las que son repuestas mediante reacciones anapleróticas.
Relación entre ciclo de Krebs y metabolismo de carbohidratos
La glucosa constituye uno de los principales combustibles metabólicos del organismo. Después de ingresar a la célula, puede degradarse mediante glucólisis hasta formar piruvato.
En condiciones compatibles con metabolismo oxidativo, el piruvato ingresa a la mitocondria y se convierte en acetil-CoA.
A partir de este momento, los carbonos procedentes originalmente de la glucosa quedan integrados al metabolismo mitocondrial.
Sin embargo, la relación entre glucosa y ciclo de Krebs es bidireccional en términos metabólicos. Algunos intermediarios, especialmente oxaloacetato, pueden desviarse hacia gluconeogénesis en órganos capaces de realizarla.
Esta interacción se vuelve particularmente importante durante ayuno.
Relación entre ciclo de Krebs y metabolismo de lípidos
Los ácidos grasos constituyen una enorme reserva energética. Mediante β-oxidación son degradados progresivamente en la mitocondria para generar acetil-CoA, NADH y FADH₂.
El acetil-CoA producido puede ingresar al ciclo siempre que exista suficiente oxaloacetato.
Durante ayuno prolongado o déficit significativo de insulina, el hígado recibe grandes cantidades de ácidos grasos procedentes del tejido adiposo. La β-oxidación genera entonces abundante acetil-CoA.
Simultáneamente, parte del oxaloacetato hepático puede desviarse hacia gluconeogénesis para mantener la glucemia.
Esta combinación produce una situación interesante: existe mucho acetil-CoA pero disponibilidad relativamente limitada de oxaloacetato para procesarlo mediante el ciclo.
Como consecuencia, parte del acetil-CoA se desvía hacia cetogénesis.
Esta relación permite comprender bioquímicamente por qué aumenta la producción de cuerpos cetónicos durante ayuno prolongado y en situaciones de deficiencia marcada de insulina.
Relación entre ciclo de Krebs y aminoácidos
Los aminoácidos no son únicamente componentes estructurales de proteínas. Sus esqueletos carbonados pueden incorporarse al metabolismo energético.
Después de retirar o transferir sus grupos amino, diferentes aminoácidos pueden convertirse en piruvato, acetil-CoA, α-cetoglutarato, succinil-CoA, fumarato u oxaloacetato.
Esto explica por qué el ciclo de Krebs representa también una intersección fundamental del metabolismo proteico.
El α-cetoglutarato posee una relación particularmente importante con glutamato, mientras que el oxaloacetato se relaciona con aspartato.
Estas conexiones permiten que las reacciones de transaminación redistribuyan grupos amino y esqueletos carbonados según las necesidades metabólicas del organismo.
Importancia de las vitaminas en el ciclo de Krebs
El metabolismo energético depende profundamente de micronutrientes que funcionan como precursores de coenzimas.
La vitamina B1 o tiamina permite formar pirofosfato de tiamina, necesario para complejos como piruvato deshidrogenasa y α-cetoglutarato deshidrogenasa.
La vitamina B2 o riboflavina participa en la formación de FAD, mientras que la vitamina B3 o niacina es precursora de NAD⁺. El ácido pantoténico forma parte de la coenzima A y la biotina participa en reacciones de carboxilación como la catalizada por piruvato carboxilasa.
Esta dependencia demuestra por qué las deficiencias vitamínicas pueden producir manifestaciones neurológicas y metabólicas profundas.
Un tejido con elevada demanda energética puede ser particularmente sensible a defectos en estas vías. El sistema nervioso, el miocardio y el músculo esquelético dependen intensamente del metabolismo energético mitocondrial.
Ciclo de Krebs y ejercicio
Durante el ejercicio, la demanda de ATP del músculo esquelético puede aumentar enormemente.
La hidrólisis acelerada de ATP incrementa ADP y otros indicadores de demanda energética. Paralelamente, la contracción muscular modifica las concentraciones intracelulares de calcio.
Estas señales favorecen la activación del metabolismo oxidativo.
El ciclo de Krebs aumenta su flujo para producir más NADH y FADH₂, que alimentarán la cadena respiratoria. La disponibilidad de oxígeno y sustratos metabólicos determinará cuánto puede aumentar finalmente la producción mitocondrial de ATP.
Durante ejercicio de alta intensidad, la demanda energética puede superar temporalmente la capacidad de producción oxidativa. En esas condiciones aumenta la contribución de la glucólisis rápida y puede elevarse la producción de lactato.
Esto no significa que el ciclo se “apague”, sino que diferentes sistemas energéticos contribuyen simultáneamente en proporciones variables según intensidad y duración del ejercicio.
Ciclo de Krebs e hipoxia
Los tejidos dependen de un suministro continuo de oxígeno para mantener la oxidación mitocondrial eficiente.
Cuando disminuye la perfusión o la oxigenación, la cadena respiratoria pierde capacidad para aceptar y transferir electrones. El NADH se acumula y la disponibilidad de NAD⁺ disminuye.
Esta alteración redox repercute directamente sobre el ciclo de Krebs.
En situaciones graves de hipoxia, la producción mitocondrial de ATP cae y la célula depende en mayor proporción de glucólisis.
Si la deficiencia energética supera la capacidad adaptativa, comienzan a fallar bombas iónicas dependientes de ATP, se altera el potencial de membrana, aumenta el calcio intracelular y finalmente puede producirse lesión celular irreversible.
Por ello, comprender el ciclo de Krebs también ayuda a comprender la fisiopatología de la isquemia.
Importancia clínica de la tiamina
La deficiencia de tiamina constituye un ejemplo clínico extraordinario de cómo una alteración bioquímica puede producir enfermedad sistémica.
El pirofosfato de tiamina es necesario para la función de piruvato deshidrogenasa y α-cetoglutarato deshidrogenasa, entre otras enzimas.
Cuando la disponibilidad de tiamina es insuficiente, disminuye la capacidad de procesar adecuadamente determinados metabolitos derivados de carbohidratos y se deteriora la producción energética oxidativa.
Los tejidos con elevada demanda energética resultan especialmente vulnerables.
Esta relación posee importancia en cuadros como beriberi y encefalopatía de Wernicke, y explica por qué la bioquímica del metabolismo energético tiene consecuencias clínicas directas.
Inhibidores y tóxicos relacionados con el ciclo
Determinadas sustancias pueden interferir con enzimas del ciclo o con vías estrechamente relacionadas.
El fluoroacetato constituye un ejemplo clásico. Después de metabolizarse puede generar fluorocitrato, capaz de inhibir aconitasa y alterar el funcionamiento del ciclo.
El arsénico puede interferir con complejos enzimáticos dependientes de ácido lipoico, afectando procesos como la oxidación de piruvato y α-cetoglutarato.
Estas intoxicaciones muestran que bloquear una sola etapa del metabolismo energético puede producir consecuencias sistémicas graves debido a la dependencia celular del ATP mitocondrial.
Ciclo de Krebs y cáncer
Durante décadas, el metabolismo del cáncer fue considerado simplemente una consecuencia del crecimiento tumoral. Actualmente sabemos que las alteraciones metabólicas pueden participar activamente en la oncogénesis.
Mutaciones en enzimas relacionadas con el ciclo, como succinato deshidrogenasa y fumarasa, pueden provocar acumulación de metabolitos capaces de modificar señalización celular y regulación epigenética.
Determinados metabolitos pueden interferir con enzimas dependientes de α-cetoglutarato y generar respuestas moleculares similares a las observadas durante hipoxia.
Además, algunas neoplasias presentan mutaciones en isocitrato deshidrogenasa que favorecen la producción de metabolitos anormales con efectos sobre la regulación epigenética.
Esta relación ha dado origen al concepto de oncometabolitos y demuestra que el ciclo de Krebs no es únicamente una vía de producción energética.
También participa indirectamente en la regulación de la identidad y comportamiento celular.
¿Por qué los eritrocitos no realizan el ciclo de Krebs?
Los eritrocitos maduros carecen de mitocondrias.
Como el ciclo de Krebs ocurre fundamentalmente en la matriz mitocondrial, estas células no pueden utilizarlo para producir energía.
En consecuencia, los eritrocitos dependen de la glucólisis anaerobia para generar ATP.
Esta característica tiene una ventaja fisiológica importante: al no utilizar oxígeno para su propio metabolismo mitocondrial, el eritrocito puede transportar el oxígeno hacia otros tejidos sin consumir una proporción significativa mediante fosforilación oxidativa.
Este ejemplo demuestra nuevamente cómo la estructura celular determina las posibilidades metabólicas de cada tejido.
El ciclo de Krebs como centro del metabolismo
Cuando se observa de manera aislada, el ciclo puede parecer simplemente una secuencia circular de ocho reacciones. Sin embargo, esa representación es incompleta.
En realidad, constituye un centro dinámico de intercambio metabólico.
Recibe carbono procedente de carbohidratos, lípidos y aminoácidos. Genera equivalentes reductores utilizados para producir ATP. Proporciona intermediarios para biosíntesis. Se adapta a disponibilidad energética. Responde al estado redox. Participa en señalización celular y se relaciona con mecanismos de enfermedad.
Esta perspectiva permite comprender por qué el ciclo permanece como uno de los conceptos fundamentales de la bioquímica médica.
Memorizar que citrato se convierte en isocitrato puede ayudar a responder una pregunta académica. Comprender por qué el flujo cambia durante ayuno, ejercicio o hipoxia permite utilizar la bioquímica para interpretar fisiología y enfermedad.
Correlación clínica: ayuno, diabetes y cetogénesis
Durante el ayuno, disminuye la insulina y aumenta la movilización de ácidos grasos desde el tejido adiposo. El hígado incrementa β-oxidación y produce grandes cantidades de acetil-CoA.
Al mismo tiempo, el organismo necesita mantener glucosa circulante para determinados tejidos. El oxaloacetato hepático puede utilizarse en mayor proporción para gluconeogénesis.
La disminución relativa de oxaloacetato limita la capacidad del ciclo para procesar todo el acetil-CoA generado.
El exceso de acetil-CoA puede entonces desviarse hacia síntesis de cuerpos cetónicos.
En diabetes mellitus con deficiencia importante de insulina, este mecanismo puede intensificarse de forma patológica. La lipólisis descontrolada aporta grandes cantidades de ácidos grasos al hígado, aumentando β-oxidación y cetogénesis.
Si la producción de cuerpos cetónicos supera su utilización y eliminación, puede aparecer acidosis metabólica.
Así, un concepto aparentemente abstracto como la relación entre acetil-CoA y oxaloacetato permite comprender parte de la fisiopatología de la cetoacidosis diabética.
Integración con la cadena de transporte de electrones
El verdadero rendimiento energético del ciclo solo puede entenderse al conectarlo con la cadena respiratoria.
Los NADH y FADH₂ generados contienen electrones de alta energía.
El NADH entrega electrones al complejo I de la cadena respiratoria. El flujo electrónico continúa hacia ubiquinona, complejo III, citocromo c y complejo IV, donde finalmente el oxígeno acepta los electrones y participa en la formación de agua.
La energía liberada durante este transporte permite bombear protones desde la matriz hacia el espacio intermembrana.
Esto genera una fuerza protón-motriz.
Posteriormente, los protones regresan a la matriz mediante ATP sintasa y la energía de ese flujo se utiliza para fosforilar ADP y producir ATP.
La succinato deshidrogenasa introduce electrones desde succinato hacia la cadena a nivel del complejo II. Como estos electrones evitan el complejo I, generan menor bombeo total de protones y, por ello, su rendimiento energético es inferior al de NADH.
Esta conexión permite comprender por qué los productos aparentemente más importantes del ciclo son precisamente NADH y FADH₂.
El ciclo captura energía.
La cadena respiratoria transforma esa energía en un gradiente electroquímico.
La ATP sintasa convierte finalmente ese gradiente en ATP utilizable por la célula.
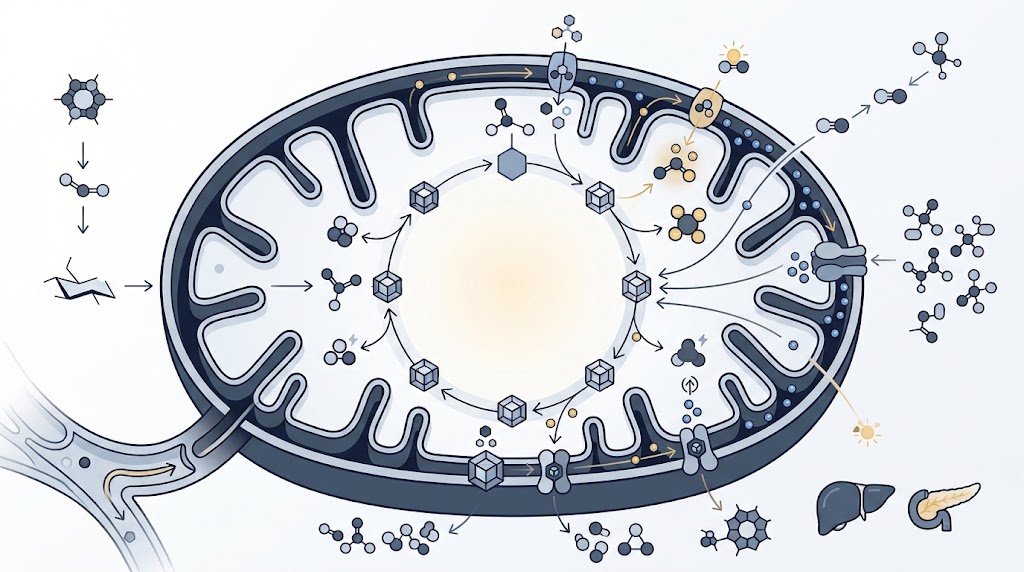
Regulación integrada del metabolismo energético
El metabolismo humano no funciona mediante vías independientes que se encienden y apagan de forma aislada. Existe una regulación integrada que coordina glucólisis, oxidación de piruvato, ciclo de Krebs, β-oxidación y fosforilación oxidativa.
Cuando la demanda de ATP es baja, aumentan señales energéticas como ATP y NADH. Esto disminuye el flujo de diferentes etapas oxidativas.
Cuando aumenta el consumo energético, ADP y otras señales favorecen producción de ATP.
La disponibilidad de sustratos también resulta determinante. No basta con disponer de acetil-CoA si los intermediarios del ciclo están reducidos. Tampoco sirve producir grandes cantidades de NADH si la cadena respiratoria no puede oxidarlo.
El metabolismo debe mantener simultáneamente equilibrio de carbono, electrones y energía.
Esta es quizá una de las ideas más importantes para comprender bioquímica: las rutas metabólicas no existen como diagramas separados. Constituyen una red interdependiente.
Importancia médica del ciclo de Krebs
El ciclo de Krebs se encuentra en el centro de numerosos procesos fisiológicos y patológicos.
Las enfermedades mitocondriales pueden reducir la capacidad de producir energía mediante metabolismo oxidativo. Las deficiencias vitamínicas pueden afectar cofactores esenciales. La hipoxia modifica el estado redox y disminuye el flujo oxidativo. Determinados tóxicos bloquean enzimas específicas. Algunas mutaciones metabólicas participan en oncogénesis.
Incluso enfermedades comunes como diabetes mellitus presentan profundas modificaciones del flujo de sustratos hacia el ciclo.
Por ello, estudiar esta vía exclusivamente como una secuencia de nombres limita enormemente su utilidad.
En medicina, la pregunta relevante no es solamente cuál metabolito sigue después del succinato. La pregunta importante es qué ocurre con una célula cuando no puede oxidar adecuadamente sus combustibles y cómo esa alteración se traduce en enfermedad.
Conclusión
El ciclo de Krebs constituye mucho más que una serie circular de ocho reacciones bioquímicas. Es uno de los principales centros de integración del metabolismo humano y establece una conexión directa entre degradación de nutrientes, producción energética, biosíntesis y regulación celular.
El acetil-CoA procedente del metabolismo de carbohidratos, lípidos y determinados aminoácidos converge en esta vía. Su oxidación permite transferir electrones hacia NADH y FADH₂, que posteriormente alimentan la cadena respiratoria y hacen posible la producción eficiente de ATP mediante fosforilación oxidativa.
Al mismo tiempo, intermediarios como citrato, α-cetoglutarato, succinil-CoA y oxaloacetato conectan el ciclo con síntesis de lípidos, aminoácidos, hemo y glucosa. Las reacciones anapleróticas mantienen el equilibrio necesario para que estas funciones biosintéticas puedan coexistir con la producción energética.
Su regulación responde constantemente al estado energético de la célula. ATP, ADP, NADH, disponibilidad de sustratos y señales como calcio permiten adaptar el flujo metabólico a las necesidades fisiológicas de cada momento.
Esta integración explica por qué alteraciones aparentemente pequeñas de enzimas, vitaminas, oxígeno o función mitocondrial pueden tener consecuencias clínicas importantes.
Comprender el ciclo de Krebs no significa memorizar un círculo metabólico. Significa comprender cómo la célula decide qué hacer con el carbono que recibe, cómo extrae de él electrones y energía, cómo reutiliza sus intermediarios y cómo modifica todo este sistema frente al ayuno, ejercicio, hipoxia o enfermedad.
Esa es la verdadera importancia del ciclo de Krebs dentro de la bioquímica médica.
Aprende el algoritmo completo del ciclo de Krebs paso a paso en E-Vantis y lleva tu razonamiento clínico al siguiente nivel.